


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Cited by Google
 Similars in
SciELO
 Similars in Google

 Permalink

INTRODUCCIÓN
Las células madre mesenquimales (CMM) denominadas así debido a su vinculación con la formación de tejidos mesenquimales durante el desarrollo embrionario 1, son células multipotenciales cuya fuente principal es la médula ósea (MO) 2,3, tienen la capacidad de autorrenovarse, y diferenciarse a linajes mesenquimales como osteogénico, adipogénico, miogénico y epidérmico, aunque también se ha demostrado su capacidad de diferenciarse a células de origen no mesenquimal, como las del tejido nervioso 1,4-6.
Diversos estudios han demostrado que las células del estroma de la MO pueden ser diferenciadas a células neuronales in vitro 7,8, e in vivo, en ensayos clínicos de trasplante de células estromales en MO humana para el tratamiento de la paraplejia traumática 9. Para inducir a la diferenciación neural han sido utilizadas diferentes metodologías; que incluyen desde el empleo de compuestos químicos 7, hasta la adición de factores neurotróficos a los cultivos 9.
Dada la capacidad de las CMM para diferenciarse a células neuronales, estas han sido utilizadas con fines terapéuticos en humanos con enfermedades neurodegenerativas 1, encontrándose que las células madre (CM) tienen potencial para restaurar neuronas y estructuras dañadas en enfermedades como Parkinson 10, esclerosis lateral amiotrófica 11-13, Alzheimer 14, esclerosis múltiple y en lesiones medulares 15.
Finalmente, las enfermedades neurodegenerativas ocasionan una significativa pérdida de células nerviosas; por lo que la diferenciación de CMM a neuronas es una alternativa a este problema. El objetivo de esta revisión es informar y comparar los métodos más utilizados para inducir a las CMM a diferenciarse en neuronas, además de mencionar las ventajas y desventajas de cada una de estas.
Estrategia de búsqueda
Se efectuó una búsqueda bibliográfica en Scopus, Science Direct y Google Scholar entre otras bases de datos, utilizando palabras como: "Diferenciación neural", "Diferenciación celular" "Células Madre", "Stem cells", "Neural Differentation". Se utilizaron artículos de hasta 10 años de antigüedad y cuando se consideró necesario, se utilizaron artículos más antiguos, teniendo en cuenta su importancia. Por último, la lista final de publicaciones fue seleccionada de acuerdo con la pertinencia para el tema tratado.
Concepto y clasificación de células madre
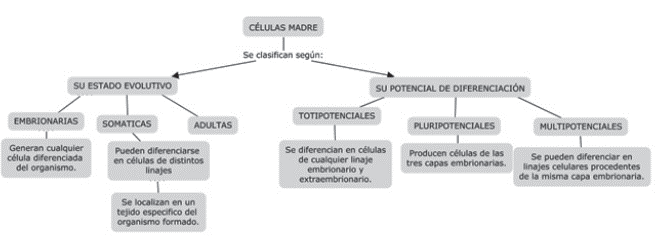
El término "célula madre" tiene un número de diferentes significados dependiendo del sistema analizado y de la perspectiva del investigador que usa el término 16. Sin embargo, de manera general las CM se definen como un tipo especial de células indiferenciadas que, entre otras características, tienen la capacidad de dividirse indefinidamente sin perder sus propiedades (capacidad de autorrenovación) y, a la vez, pueden diferenciarse en múltiples tipos de células especializadas (capacidad de diferenciación) 16-19. Las CM se clasifican según su estado evolutivo y su potencial de diferenciación como se puede apreciar en la figura 1.
Concepto de células madre mesenquimales
Las CMM son el grupo de CM somáticas que no producen linajes sanguíneos, pero tienen la capacidad para diferenciarse en células mesodérmicas; también se pueden diferenciar en células del tejido nervioso. Estas presentan características como la expresión de los antígenos CD73 (glicoproteína relacionada con mecanismos de adhesión celular), CD90 (marcador de precursores mesenquimales tempranos) y CD105 2,4,20, que permiten identificar las CMM 21,22. Adicionalmente, estas células son adherentes al plástico, lo que facilita su mantenimiento en cultivos celulares 19. Además, tienen propiedades antiinflamatorias y antiapoptóticas, haciéndolas atractivas para su empleo en protocolos de terapia celular 19,23.
Diferenciación celular: el secreto de las células madre mesenquimales
La diferenciación ocurre cuando una célula inmadura se convierte en una madura de su propio linaje, dentro del mismo tipo de células 24. Otros autores consideran que es la capacidad de las CMM de diferenciarse en múltiples células de tipo mesodérmico, como osteoblastos, con-droblastos y adipoblastos 25. En el 2012, se afirmó que la diferenciación consiste en que determinados genes se vayan silenciando a lo largo del desarrollo, de forma que la potencialidad de las células se va estrechando, hasta que acaban por pertenecer a un tipo celular concreto, con un programa de expresión génica específico 26.
Diferenciación neural de células madre mesenquimales y su potencial terapéutico
Desde hace más de un década, estudios han señalado que las células del estroma de la MO humana pueden diferenciarse en células neuronales in vitro 7,8,27, vislumbrándose el potencial terapéutico de estas células. La capacidad de autorrenovación, la multipotencia y la presencia en el cerebro adulto, son características centrales para la aplicación terapéutica de las CM en la reparación del sistema nervioso central por las siguientes razones 10,28:
La capacidad de autorrenovación genera nuevas células que reemplazan células pérdidas o proporciona apoyo nutritivo al tejido residual.
Al ser multipotenciales, las CM generan múltiples tipos de células para cualquier tejido dado. Por consiguiente, estas células poseen el beneficio adicional de producir no sólo cualquier célula, sino células neuronales en particular (es decir, neuronas, astrocitos y oligodendrocitos).
La persistencia de las CM en la edad adulta aumenta las posibilidades pertinentes para la rehabilitación.
Estudios han corroborado el potencial terapéutico que tienen las CM en enfermedades neurodegenerativas. Este es el caso del estudio llevado a cabo por Tamara en el 2015, quien observó mejoría en pacientes con enfermedad de Parkinson después de recibir tratamiento con CM adultas 29. Por lo tanto, la terapia celular es una estrategia que puede modificar favorablemente el curso de este tipo de enfermedades 30,31.
Es importante mencionar que varios autores puntualizan que después de más de 10 años de descubrimiento de las CMM, estas continúan ofreciendo inmensas posibilidades en el campo biomédico 32. Esto coincide con lo señalado por otros autores, quienes indican que los resultados obtenidos a partir de los estudios preclínicos y clínicos llevados a cabo en la últimas década demuestran que las CMM poseen una elevada capacidad inmunomoduladora, regenerativa y de cicatrización, además de actuar en las zonas dañadas como soporte trófico de las células lesionadas 20.
Diferenciación de CMM empleando compuestos químicos:
El primer reporte a cerca de la diferenciación neuronal de CMM in vitro se publicó en el año 2000, donde los autores utilizaron el 2-beta-mercaptoetanol (BME) como inductor de este proceso 7. A partir de ese momento, otros autores emplearon la misma metodología con algunas modificadones 33. Vaquero, et al., 9 evaluaron algunos compuestos químicos que se han utilizado para inducir a la diferenciación neural de las CMM. Para esto, utilizaron el hidroxianisol butilado (BHA) además del BME, y cuantificaron el porcentaje de células que expresaban marcadores neuronales.
Woodbury, et al., 7 cultivaron las CMM en medio de preinducción neural que contenía 1mM de BME y posteriormente en medio de inducción neuronal compuesto de 1-10 mM de BME. En experimentos posteriores, cambiaron el medio de inducción neuronal y utilizaron 2 % de DMSO y 200 mM de BHA. Finalmente, para optimizar la diferenciación eliminaron el BME y adicionaron 10 ng/ml de factor de crecimiento fibroblástico básico (bFGF) en el medio de preinducción 7. Encontrando que la proporción de células que presentan caracteres neuronales aumentó al usar el bFGF y eliminar el BME. La mayoría de CMM tratadas con esta metodología exhiben morfologías neuronales y expresión de enolasa neuronal específica (NSE) (78,2 % +/- 2,3 %) y neurofilamentos NF-M (79,2 % +/- 2,5 %) 7.
Por otra parte, Sánchez, et al., 33 utilizaron el BME (0,001 %) en el medio de crecimiento para las CMM. Después del segundo pasaje, el medio de cultivo fue reemplazado por medio de cultivo que contenía transferrina (100 mg / ml), putrescina (60 mM), insulina (25 mg / ml), progesterona (0,02 mM), selenio (0,03 mM), ácido trans-retinoico (RA) (0,5 mM) y BDNF (10 ng / ml) 33. Generando que la expresión de la proteína nestina en relación con la a-tubulina disminuyera en los cultivos tratados con RA o RA + BDNF. Y curiosamente, tanto GFAP y NeuN se expresaron bajo todas las condiciones de cultivo, incluido el grupo control 33.
Vaquero, et al., 9 cultivaron las CMM aisladas de la MO en medio con 1mM de BME como medio de preinducción, posteriormente, las células fueron transferidas a medio con 2 % de DMSO y 200 μM de BHA como medio de inducción neural. Para revertir los efectos de los compuestos químicos, reprodujeron el estudio, pero adicionando 1 ml de LCR humano, en el medio de preinducción neural 9. Evidenciando un 90 % ± 8 % de células NSE positivas, 88 % ± 5 % de células NF- 200 positivas y 90 % ± 3 % de células B-tubulina positivas. Respecto al segundo grupo de estudio que contenía LCR, el porcentaje de células que expresaban los marcadores fue similar, (NSE 92 % ± 4 %, NF-200 90 % ± 6 % y B-tubulina 86 % ± 5 %). Por lo tanto, los factores neurotróficos presentes en el LCR, no modificaron el proceso de diferenciación neural de CMM mediado por agentes químicos 9.
En otra investigación, las CMM fueron cultivadas en el medio de preinducción que contenía 10 ng/ml de bFGF y 20 ng/ml de factor de crecimiento epidérmico (EGF). Después, las CMM se cultivaron en medio de inducción con diferentes inductores de diferenciación neural (1mM de BME, 10-3 mM de ATRA, 0,2 % DMSO/ 0,2 mM BHA, y 0,12 mM de indometacina / 0,3 mM de IBMX) durante 48 horas 34. Las CMM inducidas con indometacina / IBMX expresaron los niveles más altos de marcadores neurales respecto a las CMM inducidas por BME, ATRA y DMSO/BHA. Finalmente, los resultados mediante Westernt blot confirmaron que las CMM inducidas con indometacina / IBMX expresaron MAP2 y GFAP en mayor cantidad, aunque se evidenció un ligero decrecimiento en la expresión de Nestina 34.
Diferenciación de CMM usando factores de crecimiento:
Chen, et al., 35 evaluaron el efecto del factor de crecimiento nervioso (NGF), el BDNF y el bFGF en combinación para promover la proliferación y diferenciación de CMM in vitro 35. Además, Huat, et al., 36 analizaron cuatro combinaciones de factores de crecimiento en la diferenciación neural de CMM que incluía el factor inhibidor de leucemia (LIF), el factor de crecimiento insulínico 1 (IGF-1), el EGF, el bFGF y el BDNF.
Chen, et al., 35 utilizaron diferentes combinaciones de factores neurotróficos formando los siguientes grupos: grupo 1 (NGF (100 g / L)), grupo 2 (BDNF (100 g / L)), grupo 3 (bFGF (20 g / L)), grupo 4 (bFGF+NGF), grupo 5 (BDNF+ bFGF), grupo 6 (BDNF+ NGF), grupo 7 (bFGF+ NGF+BDNF) y al grupo 8, no se le añadió ningún factor neurotrófico. Los autores encontraron que la combinación de NGF+BDNF+ bFGF diferenció el 50,39 % de células a linaje neural mediante la expresión de NSE y el 23, 29 % expresó GFAP diferenciándose a linaje glial. En cambio, en el grupo control, el 15,02 % de células expresaron NSE y el 14,75 % expresó GFAP. En los grupos en los que se les adicionó dos factores neurotróficos, se halló un mayor número de células que expresaban NSE, en comparación a los grupos que solo contenían un factor neurotrófico 35.
Por su parte, Huat, et al., 36 formaron 4 grupos experimentales: grupo A (EGF + bFGF + LIF), grupo B (EGF + bFGF + IGF-1), grupo C (EGF+bFGF+ LIF), grupo D (EGF + bFGF + BDNF) y grupo control (sin factores de crecimiento) y hallaron que el 94 % de células del grupo A (EGF+ bFGF +LIF), el 93,7 % del grupo B (EGF + bFGF + IGF-1), el 94,7 % del grupo C (EGF+bFGF+ LIF), el 95,7 % del grupo D (EGF + bFGF + BDNF) y el 53,4 % de las células del grupo control expresaron nestina 36.
Diferenciación de CMM usando otras metodologías:
La galanina es un neuropéptido ampliamente expresado en el sistema nervioso, desempeña funciones en diversas funciones fisiológicas y actúa como factor neurotrófico y neuroprotector para varias poblaciones neuronales 37. Por esta razón, Cordero, et al., 37 trataron de determinar el papel de la galanina en las CMM, y su contribución a la plasticidad del sistema nervioso cultivando estas células en 10 nM de galanina37
Después de la diferenciación, los cultivos tratados con galanina mostraron un marcado aumento en el número de células Tuj1 + (el 3,31 ± 0,73 % de células en el grupo control y el 13,77 ± 2,00 % de células en el grupo tratado con 100 nM de galanina expresaron Tuj1). El número de neuronas recién generadas (Tuj1+ / BrdU+) también fue incrementado por la galanina (el 1,94 ± 0,19 % de células en el grupo control y el 7,28 ± 0,49 % de células tratadas con 100 nM de galanina expresaron Tuj1 / BrdU) 37.
Por otra parte, Gong, et al., 38 consideran que aunque el ácido retinoico (RA) desempeña un papel importante en el desarrollo del sistema nervioso, sus efectos en la diferenciación neuronal de CMM y los mecanismos a través de los cuales esta diferenciación tiene lugar, todavía son poco conocidos 38. De igual forma, Xu, et al., 39 afirman que el RA tiene un rol importante en muchos aspectos del sistema nervioso, lo que implica la diferenciación y el patrón neural .
Gong, et al., 38 sembraron las CMM y al alcanzar tercer y sexto pasaje, adicionaron medio de cultivo DMEM-F12 que contenía 1 μM de RA durante 24 horas. Finalmente, el medio fue sustituido por medio neuronal modificado (1,6 % DMSO, 160 μM de BHA, 20 mM KCl, 1,6 mM de ácido valproico, 8 μM de forskolin, 0,8 μM de hidrocortisona, 4 μg/ml de insulina) durante 24 horas 38.
Este método generó que la expresión de mRNA de marcadores neuronales (nestin, NSE, MAP-2 y Tau) en las células de tipo neural derivadas de CMM tratadas con RA fuera mayor que en CMM sin el RA (P <0,05). Finalmente, en la inmunofluorescencia, el 70 % de las células tratadas con RA expresaron NSE a comparación del 10 % de las células del grupo control 38.
DISCUSIÓN
En bases de datos como Scopus se puede apreciar que el tema de la diferenciación neuronal ha venido aumentando el interés en varios investigadores, a pesar de esto en Colombia son pocas las investigaciones con este propósito; por lo que se hace importante las investigaciones en este campo. Anteriormente se mencionan algunas de las metodologías utilizadas, pero ¿Qué ventajas y/o desventajas tienen cada una de éstas?
Woodbury, et al., 7 indican, que la metodología que ejecutaron, lleva a que las CMM se diferencien a neuronas, e incluso sugieren que este estudio debe tenerse en cuenta para el tratamiento de enfermedades neurodegenerativas. Sin embargo, respecto a esta metodología es importante resaltar que al reemplazar el BME por el bFGF, se aumentó el número de células neuronales, de un 50 hasta un 78 %. Esto se puede deber a lo mencionado por otros autores, quienes indican que los compuestos químicos como el BME son tóxicos, y cuestionan la posibilidad de que este tipo de sustancias generen estrés celular y a su vez, una morfología similar a la neuronal 9,40-43, pero no genera respuestas electrofisiológicas en dichas células 40. Sin embargo, otros autores mencionan que el BME es un agente reductor que contribuye en la diferenciación y proliferación celular, e incluso, aumenta de 6 a 200 veces la supervivencia celular 44.
El uso del BME inició en el año 2000 y se ha extendido hasta los últimos años. Por ejemplo, Shu, et al., 45 usaron este compuesto químico para inducir a la diferenciación neural de CM y Tyagi, et al., 46 emplearon además de BME, la misma metodología de Woodbury, et al., 7 para el mantenimiento y diferenciación de CMM pero agregando nuevas variables 7,45,46.
Adicionalmente, Vaquero, et al., 9 usaron el LCR con el propósito de mitigar el impacto negativo generado por los agentes químicos, pero al finalizar su estudio se dieron cuenta que cuando las CMM son administradas en el espacio subaracnoideo, los factores neurotróficos del LCR no influyen significativamente en el proceso de diferenciación neural. Esto puede ser debido a la baja concentración del BDNF en el LCR 9.
Por otra parte, el problema principal del uso de los factores neurotróficos para inducir a la diferenciación neural es el elevado costo que tiene estos productos 47-49, convirtiéndose en una desventaja para la metodología de Chen, et al., 35, para la de Cordero - Llana, et al., 37 y para todas las metodologías en las que se utilicen estos factores .
La combinación de EGF, bFGF y BDNF en la metodología de Huat, et al., 36 genera la mayor cantidad de células neuronales respecto a las demás metodologías mencionadas en esta revisión (tabla 1). Lo que no coincide con lo mencionado por Barnabé, et al., 40 quienes afirman que en la inducción química el porcentaje de diferenciación excede el 70 %, lo que es demasiado alto en comparación a la diferenciación neural usando factores de crecimiento. Además, estos autores señalan que el uso de compuestos químicos solo requieren pocas horas para inducir las CMM a adquirir características morfológicas y expresar marcadores específicos de las neuronas 40.
Tabla 1 Efectividad de algunas de las metodologías utilizadas para inducir a la diferenciación neural respecto al porcentaje de células positivas a marcadores neuronales.

BME: 2-beta-mercaptoetanol; DMSO: dimetilsulfóxido; BHA: hidroxianisol butilado; IBMX: 3- isobutil - 1 - metilxantina; NGF: factor de crecimiento nervioso; BDNF: factor neurotrófico derivado de cerebro; bFGF: factor de crecimiento fibroblástico básico; EGF: factor de crecimiento epidérmico; NSE: enolasa neuronal especifica; NF-M: neurofilamentos; TUJ1: BIII tubulina.
Por otra parte, aunque la metodología de Cordero-Llana et al., 37 tiene la ventaja de usar la galanina, que es un neuropéptido altamente distribuido en el sistema nervioso, que no va a causar problemas de toxicidad en las células, también emplea factores neurotróficos, que como se menciona anteriormente, son costosos 42,52-54. Los resultados obtenidos por Cordero, et al, 37 coinciden con los obtenidos por Agasse, et al., 50 quienes señalan que la galanina es un inductor eficaz en la diferenciación neuronal de CMM y por lo tanto, mejora la neurogénesis debido a que promueve la proliferación de células precursoras neuronales.
Xu, et al., 39 y Gong, et al., 38 permiten confirmar que el RA juega un papel importante en la diferenciación de CMM al linaje neuronal. Sin embargo, el porcentaje de células diferenciadas a neuronas tampoco supera el porcentaje de células que expresan marcadores neurales en las metodologías en las que se usa compuestos químicos 7,9,38. De todas maneras, el RA debe tomarse en cuenta como una vitamina fundamental para la diferenciación neural. Es importante resaltar que Xu, et al., 39 recomiendan que la mejor concentración de RA para la diferenciación neural es 1µM 39.
Finalmente, como se puede apreciar a lo largo de esta revisión, son varias las metodologías que se han empleado para inducir a la diferenciación de CMM a neuronas, con el propósito de buscar tratamientos a enfermedades neurodegenerativas. Cada metodología presenta ventajas y desventajas, pero la elección de una u otra depende de las necesidades de cada autor. Es importante tener en cuenta, que se debe confirmar mediante diferentes métodos que las células obtenidas sean neuronas, debido a que la plasticidad de las CM requiere una cuidadosa validación. También, se sugiere la búsqueda de alternativas naturales que no requieran de compuestos químicos, factores neurotróficos y/o cultivos costosos teniendo en cuenta de que varias especies de plantas prometen un efecto positivo sobre la diferenciación 51.
CONCLUSIÓN
No se encontró una metodología que además de generar un alto porcentaje de CMM diferenciadas a neuronas, no cause problemas de toxicidad, y tampoco genere elevados costos. Todas las metodologías mencionadas presentan desventajas por lo que el uso de cualquiera depende principalmente de las condiciones con las que cuente cada investigador y de las necesidades de la investigación. También es importante evaluar la diferenciación de CMM a neuronas empleando características morfológicas, moleculares y electrofisiológicas para garantizar los resultados.

