


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Cited by Google
 Similars in
SciELO
 Similars in Google

 Permalink


Introducción
El hipopótamo (Hippopotamus amphibius) es el tercer mamífero terrestre más grande del mundo, con un tamaño de tres metros y un peso de hasta 3,2 toneladas (Eltringham, 1999). En África se estiman entre 114.140 y 129.990 individuos distribuidos en 37 países, de los cuales Zambia y Tanzania tienen las poblaciones más grandes, con 45.000 y 20.000 individuos, respectivamente (Lewison & Pluhacek, 2017). A partir de cuatro hipopótamos introducidos en la década de 1980, se estableció en Colombia la única población fuera de su área de distribución nativa (INDERENA, 1994; MAVDT, 2009), que, para el 2020, se estimaba en 85 individuos (Shurin et al., 2020), con un crecimiento proyectado de 1.400 individuos para el 2039 (Castelblanco-Martínez et al., 2021a). Debido a su alto potencial de crecimiento (Subalusky et al., 2019; Castelblanco-Martínez et al., 2021a) y a los impactos negativos de su presencia en los ecosistemas acuáticos (Shurin et al., 2020) y las especies nativas (Castelblanco-Martínez et al., 2021b), así como en los humanos y sus medios de subsistencia (Valderrama-Vásquez, 2012; El Espectador, 2020, 2021), el gobierno colombiano declaró al hipopótamo como una especie invasora (Ministerio de Ambiente y Desarrollo Sostenible-MADS, 2022).
El hipopótamo habita las sabanas y bosques ecuatoriales africanos y las actividades de su ciclo de vida, principalmente la reproducción y la lactancia de las crías, ocurren en ecosistemas acuáticos y terrestres, por lo que se considera un animal de hábitos semi-acuáticos (Eltrinham, 1999; Chansa et al., 2011a; Lewison & Pluhacek, 2017). Aunque es principalmente herbívoro, se puede alimentar de carroña en condiciones de escasez de recursos (Kingdon, 2008). Los hipopótamos son prolíficos y longevos, inician su reproducción a los cinco años, tienen un estrecho cuidado parental y a lo largo de su vida, hasta los 45 años, pueden tener hasta 25 crías (Eltrinham, 1999; Wheaton et al., 2006; Lewison & Pluhacek, 2017). Son animales gregarios que viven en grupos con una sólida estructura social y una gran capacidad de defenderse de sus depredadores (Ruggiero, 1991; Blowers, 2008), lo que repercute en una alta supervivencia, especialmente en condiciones de amplia disponibilidad de recursos.
La disponibilidad de recursos, temporal y espacialmente discontinua debido a las características climáticas de su área de distribución nativa, regula la dinámica de los hipopótamos y determina la cohesión y estructura temporal y espacial de los grupos poblacionales (Stears et al., 2019, 2021). Por su capacidad de estructurarse espacialmente dependiendo de la disponibilidad de recursos, se los considera como una metapoblación que depende de la dispersión de individuos a través de parches de hábitat similares (Levins, 1969; Schtickzelle & Quinn, 2017).
Las poblaciones de hipopótamos en África responden principalmente a la dinámica de las sequías típica de ese continente, la cual determina la disponibilidad de los recursos hídricos y alimentarios necesarios para su subsistencia (Lewison, 2007). Por su comportamiento gregario y su estructura social, cuando hay alta disponibilidad de recursos las poblaciones se distribuyen en manadas dominadas por los individuos más grandes, que mantienen los límites territoriales y una cohesión en función de los recursos necesarios según el tamaño del grupo (Blowers, 2008; Pluhacek & Steck, 2015; Stears et al., 2019, 2021). Cuando el tamaño del grupo aumenta, los individuos dominantes regulan la sobrepoblación expulsando a otros hipopótamos que retan su rol de dominancia. Así, los hipopótamos expulsados cumplen el papel de dispersión de la especie y el establecimiento de nuevos grupos en otras áreas de su hábitat (Roth et al., 2004).
En condiciones de sequía algunos grupos se fusionan para sobrevivir en zonas con una disponibilidad de recursos aceptable (Laws & Clough, 1966; Stears et al., 2019), pero otros, sometidos a condiciones drásticas de poca disponibilidad de recursos, pueden extinguirse a nivel local, principalmente por la inanición que promueve la aparición de enfermedades y el aumento de la vulnerabilidad de los animales débiles y enfermos frente a la depredación, que normalmente no es alta en condiciones de abundancia de recursos (Stears et al., 2019, 2021). Cuando las condiciones de los recursos mejoran, los grupos se dividen nuevamente y colonizan nuevas áreas, o realimentan poblaciones remanentes para continuar con la dinámica de la población asociada a la disponibilidad de los recursos (Stears et al, 2019).
Por las características mencionadas, se predice que la población de hipopótamos en Colombia seguirá incrementando rápidamente por la oferta abundante y continua de recursos alimentarios y acuáticos, y por la falta de controladores poblacionales, ya sean competidores, depredadores o sequías prolongadas (Castelblanco-Martínez et al., 2021). También se espera que la dinámica metapoblacional se incremente gracias a la conectividad hídrica constante que ofrecen los ecosistemas acuáticos en Colombia. En este contexto, en este estudio nos propusimos determinar el estado poblacional actual del hipopótamo en Colombia a partir de sus atributos demográficos y su ecología espacial, y predecir su dinámica poblacional espacial y temporal en el futuro.
Materiales y métodos
Area de estudio y muestreo
El estudio se enfocó en los ecosistemas acuáticos permanentes (7.964 Km2) dentro del área potencial de distribución del hipopótamo (43.342 Km2), la cual se extiende por las regiones fisiográficas del valle medio del río Magdalena y la depresión momposina (Moreno-Arias et al., 2021) que hacen parte de la ecorregión de los bosques húmedos del Urabá y Magdalena (Dinerstein et al., 2017) (Figura 1).
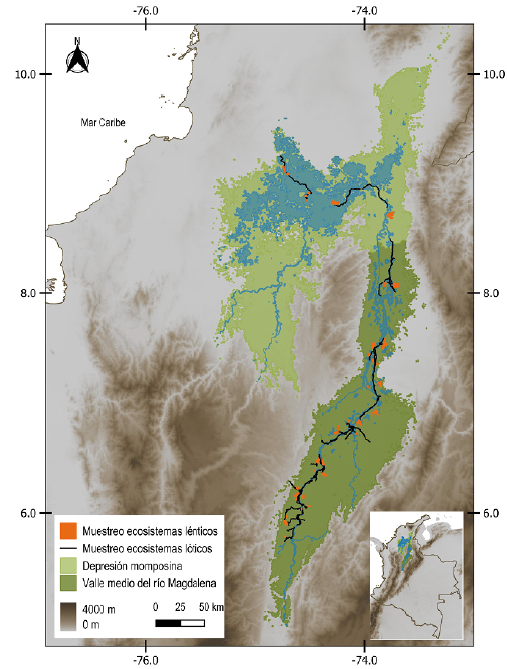
El área de estudio comprende unidades climáticas con regímenes de precipitación monomodal biestacional en la depresión momposina y bimodal tetraestacional en el valle del río Magdalena, con precipitaciones que varían entre los 1.400 y 2.600 mm, ocurriendo las mayores entre septiembre y noviembre en ambos regímenes, así como entre abril y junio en el régimen bimodal (Rangel-Ch & Carvajal-Cogollo, 2013). El comportamiento hidrológico de los principales ríos de la región sigue el ritmo de las precipitaciones con retraso de un mes, los cambios entre el estiaje (diciembre a abril) y las crecientes (mayo y noviembre) son poco bruscos (García-Lozano, 2001). El muestreo se hizo en dos momentos, el primero en noviembre de 2021 y el segundo en marzo, julio y septiembre de 2022, en un área de cerca de 1.720 Km de ecosistemas lóticos y 115 Km2 de ecosistemas lénticos.
Además de los hipopótamos, la cuenca está amenazada por otras especies con potencial invasor como el pez basa y el jacinto de agua, o por el mal manejo de especies domesticadas como el búfalo (Salgado et al., 2022), amenazas que se suman a la alta sedimentación, la contaminación por minería ilegal, la deforestación y los cambios hidrológicos asociados a las represas para producción de energía (Salgado et al., 2022).
Presencia y abundancia
Se utilizaron cinco técnicas de muestreo para detectar la presencia, el número y el tamaño de los hipopótamos; en la medida en que las características físicas de los ecosistemas lo permitieran, en cada sitio se implementaron todas las técnicas con excepción de los sitios que hicieron parte de la investigación socioecológica (Cárdenas-Botero et al., 2022). Las técnicas se aplicaron en la franja horaria de actividad diurna de la especie: de las 6:00 a las 18:00 (Inman et al, 2019).
Puntos de conteo. Esta técnica, utilizada ampliamente en censos de hipopótamos (Chansa et al., 2011b, Chansa & Milanzi, 2011; Chomba et al., 2012), consistió en hacer observaciones con binoculares desde puntos fijos en tierra firme distribuidos alrededor de las riberas y se empleó principalmente en los ecosistemas lénticos cuya extensión fuera menor a 0,1 Km2 y cuya vegetación acuática no impidiera la observación de la totalidad del espejo de agua. El número de puntos de conteo varió dependiendo del tamaño del cuerpo de agua; en cada uno de ellos por lo menos tres personas registraban por separado el número de individuos. Con el objeto de registrar individuos que estuvieran sumergidos u ocultos detrás de individuos más grandes, el conteo se repitió tres veces. Cada conteo duraba entre uno y tres minutos, con intervalos de tres minutos determinados con base en dos criterios: el primero, el tiempo de inmersión (cuatro a seis minutos) de los hipopótamos (Eltrinham, 1999), y el segundo, la reducción al máximo del tiempo de exposición de los investigadores a posibles embestidas o ataques de los hipopótamos.
Recorridos de observación. Esta técnica utilizada para detectar organismos acuáticos y semiacuáticos y sus rastros (Bennet et al., 2000; Bennet et al., 2005; Groenendijk et al., 2005) consistió en navegar el cuerpo de agua, o caminar alrededor si no era posible la navegación, para detectar directamente a los hipopótamos o revisar las riberas en busca de evidencias indirectas de su presencia, y se implementó principalmente en ecosistemas lóticos. La búsqueda de rastros se hizo en los mismos sitios escogidos para los puntos de conteo, explorando exhaustivamente el terreno para encontrar huellas, senderos y heces. Las huellas se fotografiaron para analizarlas posteriormente y determinar si correspondían a más de un individuo. La navegación se hizo a velocidades menores a 10 km/h siempre y cuando las condiciones de navegabilidad lo permitieran.
Vuelos con drones. Esta técnica se ha utilizado recientemente para censar hipopótamos, determinar su tamaño corporal y reducir el riesgo de ataques a los observadores (Linchant et aL, 2018; Inman et al., 2019; Fritsch & Downs, 2020; Inman & Leggett, 2022). Consistió en hacer vuelos de exploración de los espejos de agua para la obtención de videos de alta resolución (4K UHD), siguiendo la metodología de Inman et al., (2019), la cual describe sobrevuelos a alturas preestablecidas con la cámara posicionada perpendicularmente con respecto al terreno para realizar videos de la interfaz entre el espejo de agua y la tierra. Se utilizaron drones DJI Mavic Enterprise y Phantom 4; los vuelos se hicieron en las mismas horas del día y a 100 metros de altura medidos desde la superficie del agua. Esta técnica fue la preferida en los cuerpos de agua lénticos con altas concentraciones de gramíneas en la orilla, lo que imposibilitaba el empleo de las otras técnicas. Posteriormente, los videos se revisaron para contar los hipopótamos y estimar su tamaño corporal en cada cuerpo de agua sobrevolado.
Entrevistas no estructuradas. Esta técnica consistió en entrevistar a los habitantes de las riberas o usuarios frecuentes de los cuerpos de agua que se encontraron durante los recorridos de observación y los puntos de conteo. En la charla informal se indagó sobre los siguientes aspectos: a) si habían visto personalmente a los hipopótamos o sus rastros; b) el número de individuos; c) la presencia de crías; d) la fecha del avistamiento, y e) el lugar del avistamiento. Los registros así obtenidos se consideraron para los análisis solamente si los hipopótamos o los rastros habían sido observados directamente por el entrevistado y en los casos en que no se hubieran encontrado evidencias de presencia con las técnicas anteriores.
Entrevistas de investigación socioambiental. Esta técnica la empleó el equipo de investigación social que paralelamente desarrollaba actividades en el área de estudio. Se les solicitó que incluyeran las mismas preguntas de las entrevistas no estructuradas en los instrumentos de investigación que implementaron: entrevistas semiestructuradas, talleres y encuestas (Cárdenas-Botero et al., 2022). Solamente se incluyeron los registros que cumplieron las mismas condiciones de las entrevistas no estructuradas o si correspondían a registros por fuera de las localidades muestreadas.
Todos los registros directos e indirectos de la presencia de hipopótamos se georre-ferenciaron directamente en campo, en tanto que los provenientes de las entrevistas se georreferenciaron con base en la información del lugar ofrecida por el entrevistado, validada con las diferentes capas de información cartográfica abierta del IGAC (2022).
Distribución espacial
Para documentar la distribución espacial de la población, se analizaron los registros según el uso del espacio estimado con el método kernel use distribution (KUD) (Worton, 1989) utilizado para determinar ámbitos de hogar. A diferencia de la interpretación en los análisis de ámbito de hogar, que indican el área utilizada por uno o varios animales para sus actividades diarias relacionadas con el ciclo de vida de la especie, o la representación espacial de la interacción entre el entorno y la comprensión de un animal (mapa cognitivo) (Powell, 2000; Börger et al., 2008; Calenge, 2011), en este caso las áreas con mayor y menor concentración de registros se interpretaron respectivamente como áreas de establecimiento y áreas de movimiento. A partir de la representación gráfica de las áreas mencionadas, se determinó la distribución espacial continua o discreta de los grupos poblacionales de hipopótamos. Para determinar el área de distribución de uso de la población de hipopótamos, se construyó la distribución de probabilidad de los registros de presencia con el estimador de densidad KUD (Worton, 1989), que se aplica en ecología espacial como un método para visualizar el ámbito de hogar de los animales. Este método asigna en una superficie X y Y una densidad de probabilidad basada en el número y la cercanía de los registros de los animales, sobreponiendo una cuadrícula para estimar el valor promedio de densidad en cada celda que intersecta con la superficie de densidad de probabilidad (Burgman & Fox, 2003). A partir de dicha cuadrícula se pueden delimitar: 1) las áreas del área de distribución de uso que incluyen el 95 % de la densidad y que en este caso se interpretan como lugares de tránsito o dispersión de individuos, y 2) las áreas núcleo con el 50 % de la densidad, que representan los lugares en donde los animales concentran la mayoría de las actividades del ciclo de vida, como la alimentación y la reproducción.
Aunque el estimador KUD fue originalmente diseñado para calcular densidades de uso de animales marcados y subsecuentemente registrados en un área, esta aproximación puede aplicarse a zonas en las que subsecuentemente se avistan los animales, sea el mismo individuo o no. El trasfondo del método es determinar áreas de concentración de actividad de los animales para así estudiar las razones causantes de dicha concentración. Ambos tipos de enfoque se han utilizado para delimitar ámbitos de hogar de individuos, de grupos de individuos o de poblaciones, así como para determinar comportamientos de dispersión y establecimiento de hipopótamos pigmeos (Bogui et al., 2016) y otros animales semi-acuáticos (Balaguera et al., 2016; Moreno-Arias & Ardila-Robayo, 2020).
El análisis de área de distribución de uso se hizo con el paquete de R adehabitatHR (Calenge, 2021) utilizando la función kernelUD configurada con el método de suavizado h, recomendado para calcular la distribución de uso (Worton, 1989), y con una rejilla de tamaño 5000, que resultó en una cuadrícula de 4226 x 5000 celdas de ~ 250 m x 250 metros que abarcó la totalidad de los registros.
Demografía
Para caracterizar la demografía de los hipopótamos se tuvieron en cuenta dos atributos de la población: el número de individuos como una aproximación del tamaño de la población y la estructura basada en las clases de tamaño de la especie, propuesta por Chomba (2016). El tamaño de la población se obtuvo con procedimientos específicos en cada técnica utilizada.
En la técnica de puntos de conteo, cuando hubo más de tres puntos fijos y un número diferente de hipopótamos en cada uno, se utilizó el método de la fracción visible (Messel et al., 1981); cuando los conteos de los observadores resultaron en el mismo número de hipopótamos, se consideró ese número como el tamaño mínimo de la población en ese sitio. El método de la fracción visible se utiliza para estimar la abundancia de organismos semiacuáticos como los crocodilianos, y busca estimar el número de individuos que no se logra detectar, ya sea porque temporalmente están sumergidos o están ocultos por elementos del hábitat, a partir de una serie de observaciones consecutivas y los estadísticos de la distribución de las observaciones. La fracción visible (p) y el tamaño de la población (N) con su respectivo intervalo de confianza se calculan según las siguientes fórmulas:
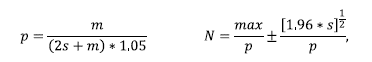
donde m corresponde al promedio de individuos observados en los conteos, s a su desviación típica y max al número máximo de individuos observados en los conteos.
2) Para la cuantificación de los rastros se tuvieron en cuenta dos criterios. El primero buscó determinar si los rastros pertenecían a un mismo individuo en el mismo lugar, para lo cual se estimó el tamaño relativo de las huellas con relación a la más grande (huella mediana ~ ½ de la grande y pequeña ~ ¼ de la grande). Con este fin se tomaron fotografías de las huellas con una escala de referencia y se analizaron en el programa ImageJ (Schneider et al., 2021) para cuantificar su tamaño. El segundo apuntaba a determinar si los rastros correspondían a diferentes individuos o grupos en las distintas localidades muestreadas en el mismo periodo; se consideró que se trataba de un mismo grupo o individuo si los rastros se encontraban dentro de un radio menor a 500 metros. El tamaño poblacional correspondió a la suma de los rastros que se pudieron establecer como de un solo individuo.
3) Para la técnica de vuelos con drones, se proyectaron los videos en una pantalla de 120 pulgadas con resolución de 1080p para la observación simultánea de seis personas, con el fin de detectar a los hipopótamos en el área sobrevolada y determinar el tamaño poblacional.
4) Para las técnicas de entrevistas, se agruparon todos los registros hechos dentro de cada área de distribución de uso (KUD 95 %) que no se traslapara con otros ámbitos. Se promedió el número de individuos referidos por cada entrevistado en cada uno de los registros y ese número se consideró como el tamaño para esa población. Este número se multiplicó por tres teniendo en cuenta que la historia natural del hipopótamo ha establecido que los grupos aislados se componen de por lo menos un macho y dos hembras, o un macho, una hembra y una cría; ese número representó el tamaño máximo estimado de la población.
Para cada sitio se escogió el mayor número de hipopótamos registrado independientemente de si se había usado más de una técnica; posteriormente se sumaron los valores de los sitios según su pertenencia a cada área de distribución de uso (KUD 95 %) y esa sumatoria representó el tamaño de la población para cada grupo de hipopótamos.
Para conocer la estructura de la población se siguió el método de Inman et al. (2019): se tomaron capturas de pantalla durante la revisión de los videos usando un reproductor VLC (VideoLan, 2006); se midieron en píxeles los individuos desde la punta del hocico hasta la base de la cola usando el programa ImageJ (Schneider et al., 2021) y, posteriormente, las medidas en píxeles fueron transformadas a un sistema métrico partiendo de que el área de muestreo del suelo de las imágenes fue de 5,2 centímetros/píxel según la relación:
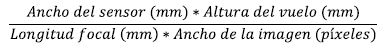
La estructura de la población se describió con un histograma de frecuencias, resaltando los límites de tamaño de crías y juveniles (<1,5 m), subadultos (1,51-2,3 m) y adultos (>2,3 m), según la propuesta de Chomba (2016).
Dinámicapoblacional del hipopótamo
Para documentar la dinámica poblacional temporal se siguieron dos aproximaciones. La primera documentó la dinámica temporal a corto plazo a partir de la comparación gráfica de los tamaños poblacionales de los cinco sitios con más hipopótamos en las temporadas de aguas altas y bajas. La segunda documentó la dinámica a largo plazo a partir de una modelación con análisis de viabilidad de poblaciones estocásticos.
Los parámetros utilizados para la modelación fueron el tamaño total de cada población, los atributos reproductivos, la capacidad de carga y las tasas vitales utilizadas en análisis similares (Castelblanco-Martínez et al., 2021a), así como la dispersión potencial entre poblaciones. Los datos de dispersión se basaron en la hipótesis de desplazamiento de al menos tres individuos desde el origen de la invasión hasta la ciénaga de Tacasaluma, Magangué, Bolívar, en un movimiento de 354 Km en 17 años estimados desde 1994, cuando se detectaron los primeros escapes, hasta el 2011, cuando se registró la presencia de la especie por primera vez en Magangué. Con esos valores se calculó una tasa de dispersión de 0,0005 individuos *km/año que luego se estimó para cada par de poblaciones teniendo en cuenta la distancia entre los centroides de su respectivo ámbito de hogar.
La dinámica futura de la metapoblación se modeló con el programa Vortex (Lacy & Pollak, 2020) hasta el año 2060, iterando cien veces para cada grupo poblacional y usando la misma capacidad de carga (215 individuos) para todos los grupos poblacionales. La proyección se modeló bajo dos escenarios: con los valores de depresión endogámica que el programa trae por defecto, y el máximo valor de depresión endogámica sugerido por el programa (Lacy & Pollak 2020) y que se esperaría en una población fundadora de apenas cuatro individuos.
Resultados
Presencia y distribución
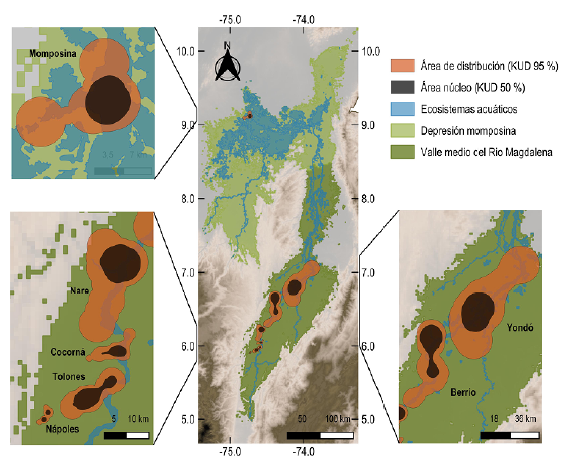
Se identificaron siete grupos poblacionales o poblaciones espacialmente discretas (Figura 2). Seis de estos grupos siguieron un patrón de poblaciones espacialmente contiguas (de sur a norte) a partir de la zona de origen de la invasión (Puerto Triunfo, Antioquia) hasta el norte de los municipios de Yondó (Antioquia) y Barrancabermeja (Santander). El séptimo grupo de hipopótamos, aislado de los anteriores, se ubicó en la zona norte del municipio de Magangué (Bolívar) (Figura 2).
Aunque se contaba con registros históricos de la presencia de hipopótamos (Moreno-Arias et al., 2021) desde el sur de la depresión momposina (incluido el sur de la ciénaga de Zapatosa) hasta el norte del Magdalena medio (corregimiento de Bodega Central, Morales, Bolívar), en el presente estudio no se logró obtener información que permitiera corroborar la presencia de la especie en esta zona. No obstante, se obtuvo información de su presencia en el complejo cenagoso de Torcoroma, en el corregimiento de Terraplén (San Martín, Cesar), la cual debe ser corroborada.
En cuanto a los grupos poblacionales contiguos, el tamaño de las áreas de distribución de uso y núcleo aumentó de sur a norte (Figura 2). El grupo de Hacienda Nápoles y Doradal (de aquí en adelante grupo Nápoles), con un área de 8,3 Km2; el grupo Río Cocorná, con 38,3 Km2; el grupo Quebrada Tolones (de aquí en adelante grupo Tolones), con 85,3 Km2; el grupo Nare, con 239,3 Km2; el grupo Berrío, con 859,5 Km2, y el grupo Yondó, con 1846,9 Km2. El grupo Momposina presentó un área de distribución de uso de 106,9 Km2. El tamaño de las áreas núcleo de los grupos contiguos en su extremo fue de 2,2 Km2 (Nápoles) y 390,6 Km2 (Yondó).
Demografía
Se obtuvieron 187 registros de la especie (153 por observación directa y 34 registros indirectos), de los cuales 177 (95 %) correspondieron a avistamientos recientes (2018 a 2022) y solamente diez (5 %) fueron individuos observados en los últimos quince años en Magangué, Bolívar: en el sector de Guazo en el 2008 y en la ciénaga de Tacasaluma en el 2011; en la parte alta del río La Miel en 2011 (Sonsón, Antioquia) y en el río Magdalena en 2006 y 2015 (Puerto Berrío y Puerto Nare, Antioquia). La población total observada fue de 169 individuos con una población mínima estimada de 181 ± 13 individuos y máxima de 215 ± 13 individuos, distribuida en siete grupos o poblaciones espacialmente estructuradas de la siguiente manera:
Grupo Nápoles, con un tamaño poblacional estimado de 117 individuos (114 observados y un tamaño máximo de la población de 122 individuos) que habitan un área aproximada de 8,3 Km2 y concentran sus actividades en dos áreas núcleo que suman 2,2 Km2 asociadas a los lagos de la Hacienda Nápoles y a los ecosistemas acuáticos del corregimiento de Doradal. Es el grupo más denso, con una densidad máxima estimada de 15 hipopótamos/ Km2 (Figura 2).
Grupo Tolones, con un tamaño poblacional estimado de siete individuos (seis observados, y un tamaño máximo de la población de 12 individuos) que habitan un área aproximada de 85,3 Km2 y concentran sus actividades en un área núcleo de 31,3 Km2 asociada a los ecosistemas acuáticos de la llanura de inundación de la quebrada Tolones hasta su desembocadura en el río Magdalena e islas adyacentes. Su densidad es de 0,14 hipopótamos/Km2 (Figura 2).
Grupo Río Cocorná, con un tamaño poblacional estimado de 31 individuos (31 observados y un tamaño máximo de la población de 31 individuos) que habitan un área aproximada de 38,3 Km2 y concentran sus actividades en un área núcleo de 9,3 Km2, y están asociadas a los ecosistemas acuáticos de la llanura de inundación del río Cocorná sur y la Isla del Silencio en el río Magdalena. Su densidad es de 0,8 hipopótamos/Km2 (Figura 2).
Grupo Nare, con un tamaño poblacional estimado de cinco individuos (tres observados y un tamaño máximo de la población de 12 individuos) que habitan un área aproximada de 239,3 Km2 y concentran sus actividades en un área núcleo de 61,2 Km2 asociada a los afluentes del río Magdalena desde el río Nare hacia el norte, en jurisdicción del municipio de Puerto Nare. Su densidad es de 0,04 hipopótamos/Km2 (Figura 2).
Grupo Berrio, con un tamaño poblacional estimado de nueve individuos (cinco observados y un tamaño máximo de la población de 15 individuos) que habitan un área aproximada de 859,5 Km2 y concentran sus actividades en un área núcleo de 256,8 Km2 asociada al río Magdalena y los ecosistemas acuáticos que forman parte de su llanura de inundación desde la cuenca del Caño Negro (Cimitarra, Santander) hasta el río San Bartolomé (Puerto Berrío, Antioquia). Su densidad es de 0,02 hipopótamos/Km2 (Figura 2).
Grupo Yondó, con un tamaño poblacional estimado de cuatro individuos (tres observados y un tamaño máximo de la población de 9 individuos) que habitan un área estimada de 1846,9 Km2 y concentran sus actividades en un área núcleo de 390,6 Km2 asociada al río Magdalena y los ecosistemas acuáticos que forman parte de su llanura de inundación desde el norte del complejo cenagoso de Barbacoas (Yondó, Antioquía) hasta el complejo cenagoso de Sardinata (Yondó, Antioquia). Su densidad es de 0,0005 hipopótamos/Km2 (Figura 2).
Grupo Momposina con un tamaño poblacional estimado de cinco individuos (cuatro observados y un tamaño máximo de la población de 12 individuos) que habitan un área aproximada de 106,9 Km2 y concentran sus actividades en un área núcleo de 26,1 Km2 asociada a la ciénaga de Tacasaluma, sur de la ciénaga de Gallinazo, ciénaga de Guayacán y los caños asociados al complejo de esas ciénagas de Magangué, Bolívar. Su densidad es de 0,1 hipopótamos/Km2 (Figura 2).
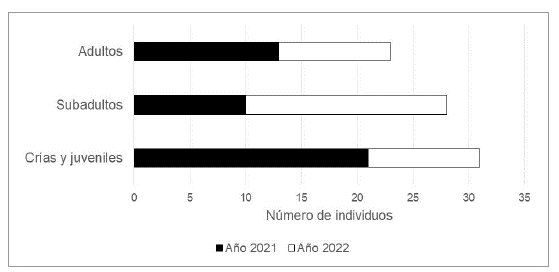
La estructura poblacional basada en 82 individuos que se lograron medir completamente presentó una forma de pirámide, con una población en crecimiento y alta capacidad reproductiva y de reclutamiento, en la cual las clases de tamaño de crías y juveniles (38 %) dominan la base de la pirámide, seguidas por los subadultos (34 %) y los adultos (28 %) (Figura 3). Se evidenció un decrecimiento de crías y juveniles con el subsecuente incremento de subadultos en los años 2021 y 2022, lo que indica una población con un rápido crecimiento corporal y maduración sexual (Figura 3).
Dinámica poblacional
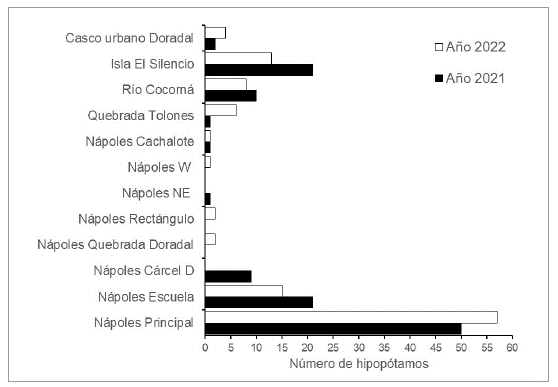
La dinámica temporal de corto plazo de la población de hipopótamos, obtenida a partir de los 11 sitios con el mayor número de individuos registrados, mostró una disminución general de individuos de 0,8 % entre la época de aguas altas de 2021 hasta el final de la primera temporada de aguas bajas de 2022 (116 individuos y 109 individuos, respectivamente), en tanto que, por sitio, cinco presentaron incrementos de un año a otro y los otros seis, decrecimientos (Figura 4).
La dinámica temporal de la metapoblación a largo plazo fue similar en las proyecciones basadas en una baja y una alta depresión endogámica (Figura 5), ambas con un rápido crecimiento de 9 % y 8 % anual que alcanzó la capacidad de carga en los años 2044 y 2041, estabilizándose en alrededor de 1.250 individuos en el año 2060, pero con una mayor fluctuación en la de baja endogamia. La mayor velocidad de crecimiento ocurrirá alrededor del año 2035, cuando haya 743 ± 7 individuos en condiciones de baja depresión endogámica y 738 ± 6 en condiciones de alta depresión (Figura 5).
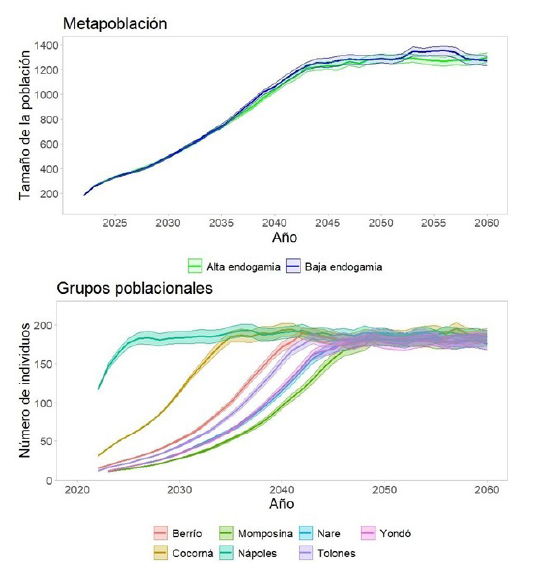
Figura 5 Dinámica de la metapoblación en escenarios de baja y alta depresión endogámica (arriba) y de los grupos poblacionales (abajo) entre los años 2022 y 2060. La línea indica la trayectoria del tamaño de la población y el área asociada es el intervalo de confianza de 95 %.
Por grupo poblacional, se espera que la población más grande alcance su mayor tamaño (215 individuos) en los próximos tres años (Figura 5). Además, en esos mismos años se estima que esta población crezca a una tasa anual de 26 % a 25 % bajo condiciones de baja y alta depresión endogámica, respectivamente. Para los grupos restantes, se espera que lleguen a su máxima velocidad de crecimiento cuando tengan alrededor de 105 individuos, estimando que esto ocurrirá en el 2030 para el grupo Cocorná, en el 2036 para el Berrío, en el 2037 para el Tolones, en el 2039 para el Nare y el Yondó y en el 2042 para el Momposina. En esos años se proyecta un crecimiento anual entre el 10 % (grupo Momposina con alta depresión endogámica) y el 15 % (grupo Cocorná) con variaciones del 1 % según la condición endogámica modelada (Figura 5).
Discusión
La aplicación conjunta de múltiples técnicas de muestreo permitió estimar que el tamaño actual de la población de hipopótamos es de mínimo 181 y máximo 215 individuos que se distribuyen en un área de 3184 Km2, lo que representa una ocupación del 7 % del área potencial de distribución. Aunque el esfuerzo de muestreo fue amplio y abarcó todos los ecosistemas aptos para el hipopótamo en diferentes épocas climáticas (aguas altas y bajas), aún existe una amplia extensión de hábitat en la cual pueden existir otros grupos de hipopótamos. Esta extensión incluye: 1) zonas inundables al occidente del río Magdalena en los municipios de Yondó (Antioquia), así como en Cantagallo y San Pablo (Bolívar), y 2) zonas inundables en el norte del Magdalena Medio, en los municipios de Puerto Wilches (Santander) y Simití (Bolívar), las cuales no se incluyeron en este estudio debido a la presencia de grupos armados ilegales y a las condiciones que limitaron el acceso o la navegación por el cambios en los cursos de agua o su desecación.
Independientemente del número adicional de hipopótamos que se puedan registrar en las zonas mencionadas, dicho tamaño poblacional ubica al país en el puesto 26 de 38 entre los países en los que los hipopótamos se distribuyen (Lewison & Pluhácek, 2017). Se evidencia, así, el éxito que ha tenido la especie invadiendo parte del territorio colombiano en apenas 29 años. Este proceso de invasión biológica se ha visto favorecido por la ausencia de sequías prolongadas, las cuales predominan en su área de distribución nativa y funcionan como controlador poblacional al limitar los recursos alimentarios y acuáticos (Lewison, 2007).
En Colombia la disponibilidad de recursos es estable temporalmente y continua espacialmente, por lo que el factor más importante para la dinámica poblacional de los hipopótamos es el comportamiento, especialmente el de las interacciones entre individuos dominantes y no dominantes que permiten la fusión y división de grupos en función de su densidad (Roth et al., 2004; Pluhacek & Steck, 2015; Stears et al., 2019).
La disponibilidad continua de recursos permite una distribución contigua de grupos de hipopótamos en el país. Las zonas de África con climas o recursos estables son las que soportan las poblaciones más grandes de la especie, por ejemplo, la del río Luangwa en Zambia (Lewison & Pluhácek, 2017). El patrón de contigüidad de los grupos, el gran tamaño poblacional de algunos de ellos (por ejemplo el Nápoles), y en general la gran extensión de los ámbitos de hogar y áreas núcleo de los hipopótamos en Colombia contrasta con el patrón dominante en áreas de África con recursos restringidos y sequias prolongadas en donde los grupos son pequeños (<50 individuos) y dispersos (Kanga et al., 2011; Scholte & Iyah, 2016).
La estabilidad de recursos en Colombia también explicaría la respuesta similar observada en la dinámica temporal de corto plazo entre épocas de aguas altas y bajas, y difiere de la documentada en África, que se caracteriza por un mayor número de hipopótamos en aguas bajas ocasionado por la disminución del hábitat acuático (Ansell, 1965; Scotcher, 1978; Laws & Clough, 1966). En ese sentido, dicha estabilidad al crecimiento poblacional rápido y a la nula probabilidad de extinción que se proyectó en el largo plazo. No se descarta que la alta densidad del grupo Nápoles también haya sido influenciada por las medidas de suplementación alimenticia que han hecho Cornare y el parque para la esterilización y para mantener grupos grandes de hipopótamos como una atracción para sus visitantes.
Tomando en cuenta que los grupos poblacionales en Colombia están fuertemente interconectados, se estructuran espacialmente en condiciones similares de hábitat y tienen poca probabilidad de extinción, se puede considerar que los hipopótamos en el país se ajustan a una metapoblación de tipo parches que exhibe alta dispersión y una baja o nula probabilidad de extinción (Schtickzelle & Quinn, 2017).
El grupo Momposina es un caso de una población aislada que pudo originarse por una dinámica de dispersión diferente. Una opción plausible es que este grupo se haya formado por una dispersión mediada por el hombre, ya sea por una translocación de hipopótamos que se hizo al Zooparque Los Caimanes, en Buenavista, Córdoba, y que, gracias a las inundaciones frecuentes de la región de La Mojana en donde se ubica el zooparque, algunos individuos se hayan escapado y desplazado hacia el norte, o por el tráfico de individuos como animales de ornato para predios privados, una práctica ilegal que ya ha sido documentada.
No haber encontrado evidencia de hipopótamos al sur de la depresión momposina podría indicar que la continuidad y la gran extensión de hábitat idóneo disminuyen la probabilidad de detección de individuos errantes o grupos pequeños, que bajo las condiciones fisiográficas propias de la subregión de la depresión, las rutas y comportamientos de dispersión de los hipopótamos difieran, haciéndolos menos visibles, o que la dinámica de inundación frecuente diluya los rastros imposibilitando encontrar evidencia de su presencia.
Los atributos demográficos de distribución espacial, tamaño y estructura de los grupos de hipopótamos en Colombia indican claramente que la especie ya se encuentra totalmente establecida y tiene un gran potencial para seguir ocupando áreas dentro del posible hábitat de distribución. La dinámica temporal de largo plazo indicó que seis de los siete grupos poblacionales tendrán un crecimiento entre 10 y 20 % anual, aún bajo las condiciones de baja dispersión entre poblaciones y alta depresión endogámica, y que alcanzarán su máximo crecimiento antes de diez años. Un caso preocupante es el del grupo Nápoles, cuyas proyecciones indican que ya se encuentra en su fase de mayor crecimiento y se acercará a su capacidad de carga en los próximos cinco años.
Ese elevado crecimiento a nivel de grupos se traduce en un crecimiento de la metapoblación a una tasa anual de 8 %, un valor menor al descrito por otros autores (Castelblanco-Martínez et al., 2021a). La diferencia radica en que en esta proyección se incluyó la estructura espacial, estructura de edades y la dispersión, factores que inciden diferencialmente en la tasa de crecimiento de cada grupo. Sin embargo, es importante resaltar que el tiempo estimado para que la metapoblación crezca a mayor velocidad fue similar a las estimaciones de Castelblanco-Martínez et al. (2021a).
La proyección poblacional de largo plazo mostró una baja estocasticidad demográfica, a pesar de que la población fundadora estaba conformada por cuatro individuos, lo que indica una baja influencia de la posible depresión endogámica como controlador del crecimiento de la población y sugiere que las características climáticas y ecológicas favorables del país han sido los mecanismos promotores del éxito de su invasión, los cuales estarían actuando en contraposición a la baja diversidad genética según la paradoja genética de las invasiones biológicas (Schrieber & Lachmuth, 2017). Es posible que esas condiciones también estén teniendo efectos positivos en la fisiología de los hipopótamos, permitiendo que se asemejen a la de animales en cautiverio que viven en condiciones de alimentación y salud superiores a los que encuentran en el medio silvestre, y que se reflejan en una maduración más temprana de las hembras debido a una buena nutrición, con un crecimiento somático y del peso corporal más rápido, lo que es un factor clave para la maduración del sistema reproductivo (Moreno et al., 2000; Wheaton et al., 2006).
Los grupos de hipopótamos no responden como un solo conjunto bajo las mismas condiciones de invasibilidad (Hulme et al., 2008), sino que cada uno responde dependiendo de su tamaño y tiempo en el territorio; por ello los grupos varían en este sentido (Hulme et al. , 2008) para poder establecerse exitosamente en el territorio. Esa respuesta diferencial de los grupos de hipopótamos se ajusta a los paradigmas de invasión biológica que ejemplifican los procesos que ocurren durante una invasión: población introducida, establecida, en expansión y expandida (Department of Environment and Primary Industries - DEPI, 2010; Blackburn et al., 2011; Robertson et al., 2020)
Los grupos Nápoles, Río Cocorná y Tolones ya son poblaciones expandidas que se han establecido de largo tiempo atrás en el territorio y sus individuos se reproducen activamente, eso se refleja en sus ámbitos de hogar moderados y su alta densidad (Figura 6). Los grupos Nare y Berrío son poblaciones en expansión que llevan establecidas un menor tiempo en el territorio y sus individuos tienen alto potencial de dispersión, lo que se refleja en sus densidades moderadas y ámbitos de hogar extensos (Figura 6). Los grupos Yondó y Momposina son poblaciones en proceso de establecimiento, con ámbitos de hogar extensos y densidades muy bajas que sugieren animales aún en busca de territorios, pero que se reproducen esporádicamente (Figura 6). Por último, a pesar de no tener evidencia de la presencia de la especie, el área al sur de la depresión momposina y norte del Magdalena medio se configura como un área susceptible para la introducción de nuevas poblaciones (Figura 6).
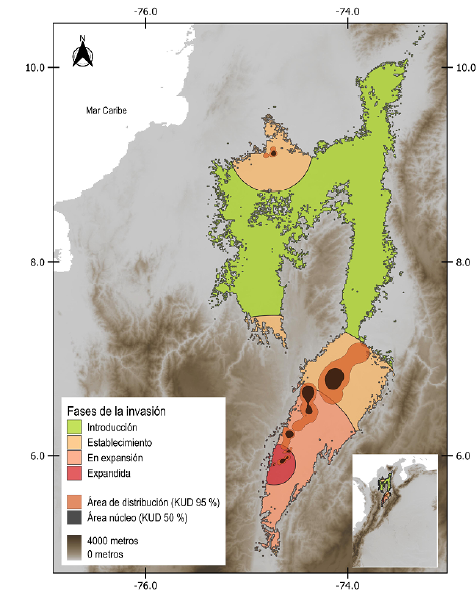
La distribución discreta de los grupos poblacionales y el estado de invasión descrito en este estudio, además de describir la magnitud y características de la invasión, indican una línea de base que debería ser tenida en cuenta para el manejo y monitoreo de la especie. La caza de control, instrumento jurídico del país para hacer frente al manejo de especies de animales invasores, es la medida transversal y principal que debería aplicarse a todos los grupos identificados, ya sea para controlar la dispersión, reducir los impactos ambientales o avanzar con la erradicación. Este instrumento debería comenzar a aplicarse prioritariamente en los grupos más densos, como Nápoles y Cocorná (Figura 6), para evitar la dispersión de individuos hacia otras zonas de la cuenca y reducir los impactos de las altas densidades de estos animales en el ambiente. En segundo lugar, se debería implementar para el resto de grupos como una medida de erradicación o de prevención del establecimiento en zonas potenciales de introducción. Además, se debe mantener la gestión para la translocación de individuos a zonas confinadas y nunca para suplementación de poblaciones nativas, debido a la baja variabilidad genética de las poblaciones que habitan los ecosistemas colombianos. Es necesario crear sistemas de alertas tempranas con la participación de las comunidades locales en las áreas potenciales de introducción (Figura 6) para tomar medidas de erradicación y así evitar el establecimiento de nuevos grupos poblacionales; estas mismas medidas, enfocadas a evaluar la abundancia de hipopótamos en las otras zonas de la invasión (establecimiento y expansión) (Figura 6), serán guías útiles para la evaluación de las estrategias de manejo planteadas y como herramienta para el manejo adaptativo de la invasión.

