


Services on Demand
Journal
Article
 text in
 English (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
Indicators
-
 Cited by SciELO
-
 Access statistics
Related links
-
 Cited by Google
-
 Similars in
SciELO
-
 Similars in Google
Share

 Permalink

Boletín de Investigaciones Marinas y Costeras - INVEMAR
Print version ISSN 0122-9761
Bol. Invest. Mar. Cost. vol.52 no.1 Santa Marta Jan./June 2023 Epub Oct 17, 2023
https://doi.org/10.25268/bimc.invemar.2023.52.1.1153
Artículos de Investigación
Composición florística de macroalgas asociadas a Rhizophora mangle (Rhizophoraceae) en dos ensenadas del Caribe venezolano
1
 http://orcid.org/20000-0002-1631-7462
2
http://orcid.org/0000-0001-6352-0343
1Grupo de Investigación en Biodiversidad y Ecología de Ecosistemas Acuáticos, Departamento de Acuicultura Pesca y Recursos Naturales Renovables, Facultad de Ciencias Veterinarias, Universidad Técnica de Manabí (UTM)., Bahía de Caráquez, Manabí, Ecuador. vanessaacosta@yahoo.com
2Laboratorio de Ecología, Departamento de Biología, Escuela de Ciencias, Universidad Universidad de Oriente, Cumaná, Estado Sucre 6101, Venezuela. beligotq@gmail.com
3Departamento de Biología Marina. Instituto Oceanográfico de Venezuela, Universidad de Oriente, Cumaná, estado Sucre, 6101, Venezuela. jebarster@gmail.com
4Coordinación de Proyectos de Investigación, Universidad Politécnica Territorial de Oeste de Sucre Clodosbaldo Russian, Sede Araya, Venezuela. erickxander1994bio@gmail.com.
An inventory of the phycoflora associated with Rhizophora mangle roots was carried out in the Carenero and Turpialito coves, located in the southeastern Caribbean of Venezuela. Bimonthly samplings were carried out at four stations (November 2012-September 2013), in which data on temperature and surface salinity of the water were taken and the macroalgae associated with five roots per station were collected. A total of 23 species were identified, corresponding to three phyla: 11 Chlorophyta, 7 Ochrophyta and 5 Rhodophyta, with 14 species common to both coves, distributed according to their functional morphotypes in 7 foliaceous, 7 siphonal, 4 corticate, 3 filamentous and 2 calcareous. articulated. The average values of temperature and salinity showed temporal differences in both coves. Specific richness ranged between 17 (Carenero) and 20 (Turpialito), with appreciable space-time changes only in Carenero. Seven are new records for the Gulf of Cariaco, Anadyomene sp., C. verticillata, H. tuna, U. rigida, H. spinella, D. implexa and D. delicatula. The topography and diversity of environments directly influenced the composition and assembly of the phycoflora associated with the roots of Rhizophora mangle, resulting in a difference in variability in the distribution and presence of algal species in each cove.
KEYWORDS: red mangrove; phycoflora; algal morphotypes; Chlorophyta; richness
Se realizó un inventario de la ficoflora asociada a raíces de Rhizophora mangle en las ensenadas Carenero y Turpialito, ubicadas en el Caribe suroriental de Venezuela. Se efectuaron muestreos bimestrales en cuatro estaciones por ensenada (noviembre 2012-septiembre 2013), en las cuales se tomaron datos de temperatura y salinidad superficial del agua y se recolectaron las macroalgas asociadas a cinco raíces por estación. Se identificaron 23 especies en total, correspondientes a tres phyla: 11 Chlorophyta, 7 Ochrophyta y 5 Rhodophyta, con 14 especies comunes para ambas ensenadas, distribuyéndose según sus morfotipos funcionales en 7 foliáceas, 7 sifonales, 4 corticadas, 3 filamentosas y 2 calcáreas articuladas. Los valores promedios de temperatura y salinidad, presentaron diferencias temporales en ambas ensenadas. La riqueza especifica osciló entre 17 (Carenero) y 20 (Turpialito), con cambios espacio-temporales apreciables solo en Carenero. Siete son nuevos registros para el golfo de Cariaco, Anadyomene sp., C. verticillata, H. tuna, U. rigida, H. spinella, D. implexa y D. delicatula. La topografía y diversidad de ambientes, influyeron directamente en la composición y ensamble de la ficoflora asociada a las raíces de Rhizophora mangle, dando como resultado una diferencia en la variabilidad en la distribución y presencia de las especies algales en cada ensenada.
PALABRAS CLAVE: mangle rojo; ficoflora; morfotipos; Chlorophyta; riqueza
INTRODUCCIÓN
El ecosistema manglar es complejo y dinámico, particularmente el sistema radical sumergido de Rhizophora mangle, que forma una intrincada red que va desde el nivel superior de la marea hasta el sublitoral. La forma casi cilíndrica de la raíz constituye un substrato con una amplia superficie de contacto disponible para la colonización de organismos sésiles, entre los cuales destaca la flora algal, que puede llegar a conformar junto a diversos grupos de invertebrados, comunidades con una alta riqueza de especies (Ellison y Farnsworth, 1992; Hogarth, 2007).
Dentro de los manglares, las macroalgas juegan un papel importante al actuar como productores primarios de la compleja cadena trófica de este ecosistema; además poseen un importante valor ecológico, constituyendo filtros naturales que retienen sedimentos y aportan grandes cantidades de materia orgánica en forma de detritus enriquecido desde el manglar a los ecosistemas vecinos, representando su biomasa, una contribución importante en la producción de carbono orgánico; así mismo las macroalgas también son indicadoras ambientales de cambios fisicoquímicos, generados por eventos naturales o antropogénicos (Steinke y Naidoo, 1990; Laursen y King, 2000).
En el Caribe se han realizado numerosos estudios de macroalgas asociadas a ambientes de manglar, la mayoría son inventarios o trabajos taxonómicos, registrándose en esta región 109 especies (Cordeiro-Marino et al., 1992). Para el Caribe mexicano Collado-Vides et al. (1995) identificaron 52 especies de macroalgas asociadas a manglares en el sistema lagunar de Nichuptè. En Cuba se totalizan 163 macroalgas asociadas a esta comunidad, donde predominan especies pantropicales y en ocasiones, cosmopolitas (Martínez-Daranas, 2005).
En el Caribe de Panamá se describió la zonación vertical de macroalgas en las raíces de R. mangle, identificándose once especies del phylum Rhodophyta, de las cuales Bostrychia montagnei, B. moritziana, B. tenella, Polysiphonia howei, P. scopulorum, A. spicifera y C. caespitosa, fueron las más abundantes (Ríos et al., 2019), mientras que en el Caribe suroccidental colombiano, se registra la mayor diversidad de macroalgas epibentonicas asociadas al sistema de raíces de R. mangle (Salazar-Forero et al., 2021) constituida por 36 especies de macroalgas (21 Rhodophyta, once Chlorophyta y cuatro Phaeophyceae). No obstante, estos últimos estudios destacan la necesidad de incrementar el conocimiento de la biodiversidad, distribución y estacionalidad de la comunidad ficoflorística asociada al mangle rojo, para comprender mejor la dinámica y servicio ecológico que éstas brindan en los manglares en el Caribe.
En Venezuela los primeros trabajos sobre macroalgas en manglares fueron realizados por Post (1936, 1963), quien estudió la asociación de las algas rojas Bostrychia y Caloglossa. Hammer y Gessner (1967) identificaron macroalgas presentes en manglares de las costas orientales de Venezuela. Díaz-Piferrer (1970) generó un inventario donde menciona algunas especies asociadas a raíces de mangle rojo en el golfo de Venezuela, lago de Maracaibo, costas de los estados Anzoátegui, Sucre y Nueva Esparta. González (1977), Lobo y Ríos (1985), Albornoz (1988), González y Vera (1994) y Vera (2004) aportaron listados de macroalgas para Falcón y en particular el Parque Nacional Morrocoy.
López et al. (2009) identificaron 40 especies de macroalgas en raíces de R. mangle en la península de Paraguaná (Falcón), siendo este trabajo el que menciona la mayor cantidad de especies para este substrato en el país. En el oriente de Venezuela, resaltan los estudios de Barrios et al. (2004) en golfo de Santa Fe y en Caño Mánamo-Delta Amacuro (Barrios y García, 2013), registrando la asociación Bostrychietum típica de manglares, en la que predominan las rodofitas que presentan numerosos mecanismos de adaptación a la desecación y a las fluctuaciones de salinidad y temperatura. A pesar de los estudios realizados, aún existe poco conocimiento sobre las macroalgas asociadas a las raíces del mangle rojo, por lo que se realizó un levantamiento ficoflorístico, con la finalidad de conocer la composición de macroalgas asociadas a raíces de R. mangle en dos ensenadas del Caribe suroriental de Venezuela.
MATERIALES Y MÉTODOS
Área de estudio
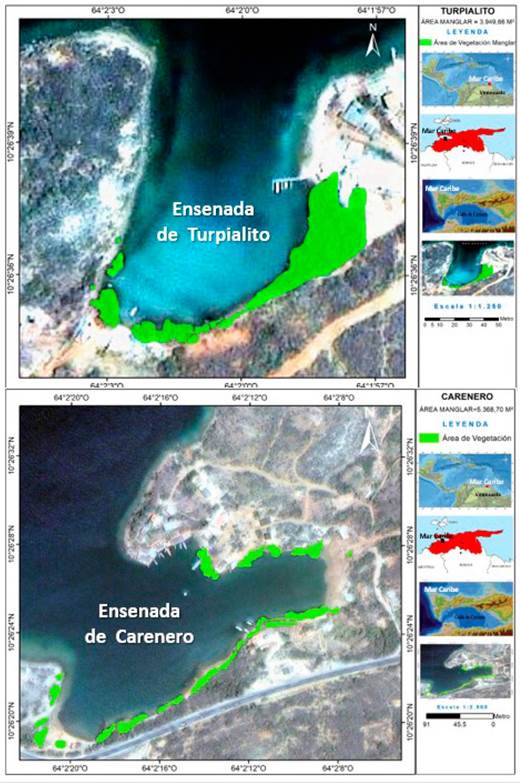
Las ensenadas de Turpialito (10º 26’ 5” N, 64º 02’ 56” O) y Carenero (10 º 26’ 42” N, 64° 2’ 16” O), se sitúan en la costa sur del golfo de Cariaco, ubicada en el Caribe suroriental de Venezuela. Los manglares que bordean la ensenada de Carenero están conformados por: R. mangle, Laguncularia racemosa, Conocarpus erectus y Avicennia germinans, la composición de los manglares es similar en Turpialito, a excepción de esta última especie. Rhizophora mangle es el mangle dominante en ambas ensenadas, ocupando un área de 5368,70 m2 en Carenero y 4001,43 m2 en Turpialito. La longitud de la boca de estas ensenadas varía entre 118,54 y 175,97 m, siendo mayor en Turpialito (Figura 1).
Diseño de muestreo
Las ensenadas evaluadas presentan ambientes marinos similares, con parches de coral y Thalassia testudinum, así como sustratos carentes de vegetación y áreas rocosas asociadas a los manglares. Con base a estos diferentes ambientes y a la cobertura del mangle rojo, se establecieron cuatro estaciones en cada ensenada, distribuidas de la siguiente manera:
Ensenada de Carenero
Estaciones 1 y 2: presentan raíces bien desarrolladas, sumergidas en su totalidad hasta profundidades de 1,0 a 1,2 m respectivamente, con parches de T. testudinum y corales. Estación 3: el manglar es menos desarrollado, sus raíces están sumergidas a una profundidad promedio de 0,50 m, sujetas a cambios de marea y poca presencia de T. testudinum. Estación 4: ubicada frente a la boca de la ensenada, adyacente a una zona rocosa y expuesta a corrientes moderadas durante todo el año, con raíces menos desarrolladas a una profundidad promedio de 0,45 m.
Ensenada de Turpialito
Estaciones 1 y 2: cercanas a parches de T. testudinum, con una profundidad promedio entre 0,7 a 1,0 m. Estación 3: el mangle rojo se encuentra poco desarrollado, adyacente a un banco de arena muy fina, por lo cual, las raíces se encuentran poco sumergidas (0,55 m). Estación 4: el manglar está ubicado frente a la boca de la ensenada, en una zona rocosa, expuesto a corrientes moderadas con una profundidad de unos 0,5 m.
Factores ambientales
Con la finalidad de conocer si existen cambios espaciotemporales, se obtuvieron por triplicado, en cada ensenada registros de temperatura y salinidad, con una sonda multiparamétrica modelo YSI6600.
Obtención de la ficoflora
Las macroalgas se recolectaron bimestralmente, desde noviembre de 2012 hasta septiembre de 2013. En cada ensenada se escogieron al azar tres raíces de R. mangle por estación, las algas presentes se recolectaron manualmente mediante raspado de la raíz, con la finalidad de extraerlas con sus estructuras de fijación. Las muestras fueron colocadas en bolsas de polietileno previamente etiquetadas y envueltas en papel, para que mantuvieran suficiente humedad y permanecieran en buen estado por más tiempo. En el laboratorio, cada muestra fue lavada cuidadosamente y colocada en recipientes con una solución de formaldehído al 4 % en agua de mar. Para la identificación taxonómica de las algas hasta el taxón más bajo posible, se observaron los caracteres morfológicos más distintivos, mediante cortes histológicos realizados a mano alzada y con éstos se prepararon láminas semipermanentes, utilizando glicerina al 30 % como medio de montaje, según la técnica modificada de Womersley (Ramírez, 1995). La observación se realizó mediante un microscopio Labomed LX400 de campo claro. Las muestras colectadas fueron herborizadas e incorporadas al Herbario Ficológico del Instituto Oceanográfico de Venezuela, Universidad de Oriente.
Identificación taxonómica
Para la identificación taxonómica se utilizaron los trabajos de Taylor (1960), Chapman (1961, 1963), Joly (1967), Lemus (1979), 1984), Aponte (1985), Littler y Littler (2000) y Dawes y Mathieson (2008). Se corroboro la clasificación y distribución de las macroalgas según los catálogos de Ganesan (1989), Wynne (2017), Carballo-Barrera et al. (2020) y Guiry y Guiry (2020). Los diferentes tipos morfo-funcionales de las macroalgas fueron establecidos según los criterios propuestos por Steneck y Dethier (1994).
Composición florística
Se estimaron índices ecológicos como la Riqueza Específica (S), contando el número total de especies identificadas en cada ensenada y estación de muestreo (Margalef, 1986) y Constancia especifica (C), obtenida mediante la fórmula definida por Krebs (1985), para la cual se establecen tres categorías: C = Constante (especies en más de 50 % de los muestreos), A = Accesoria (especies entre 25 y 49,9 % de los muestreos) y Acci = Accidental (especies en menos de 24,9 % de los muestreos).
Análisis estadístico
Para comparar los valores de temperatura y salinidad entre los meses y estaciones de muestreo, se realizó el análisis de varianza no paramétrica de Kruskal-Wallis (Siegel y Castellan, 1994) utilizando el programa estadístico Statgraphics Centurión 5.1.
RESULTADOS
Factores ambientales
Los valores promedio de temperatura mostraron diferencias significativas temporales para ambas ensenadas (Carenero: KW P = 0,02, Turpialito: KW P = 0,003), sin variabilidad significativa entre las estaciones (Carenero: KW P = 0,88, Turpialito: KW P = 0,58). En Carenero (Figura 2 a-b) la temperatura oscilo entre 29,4 ºC (noviembre/12) y 23,3 ºC (septiembre/13); mientras que en Turpialito (Figura 3 a-b), este factor fluctuó entre 29,8 ºC (noviembre/12) y 25,5 ºC (enero/13).
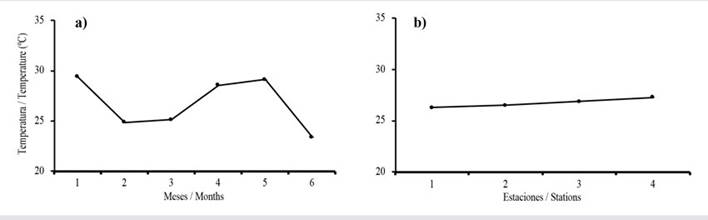
Figura 2 Variación a) bimestral y espacial b) de la temperatura del agua en la ensenada de Carenero (golfo de Cariaco), en el Caribe suroriental de Venezuela.
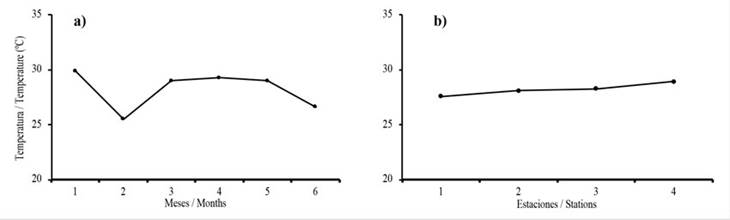
Figura 3 Variación bimestral a) y espacial b) de la temperatura del agua en la ensenada de Turpialito, en el Caribe suroriental de Venezuela.
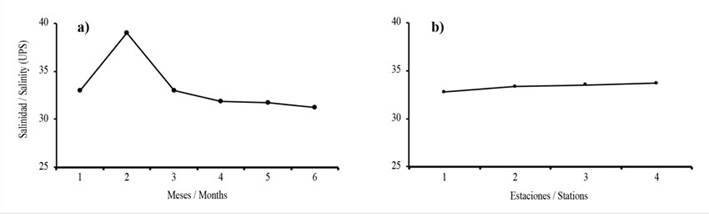
La salinidad mostró diferencias significativas temporales (Carenero: KW P = 0,001, Turpialito: KW P = 0,003), no así entre estaciones (Carenero: KW P = 0,85, Turpialito: KW P = 0,90). En Carenero (Figura 4 a-b), este parámetro osciló entre 31 en noviembre/12 hasta 36,2 en enero/13, mientras que en Turpialito (Figura 5 a-b), se registró una mayor variación, oscilando entre 33 y 39 para los mismos meses.
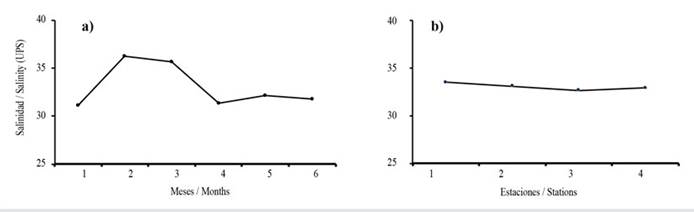
Figura 4 Variación a) bimestral y b) espacial de la salinidad del agua en la ensenada de Carenero (golfo de Cariaco), en el Caribe suroriental de Venezuela.
Identificación taxonómica
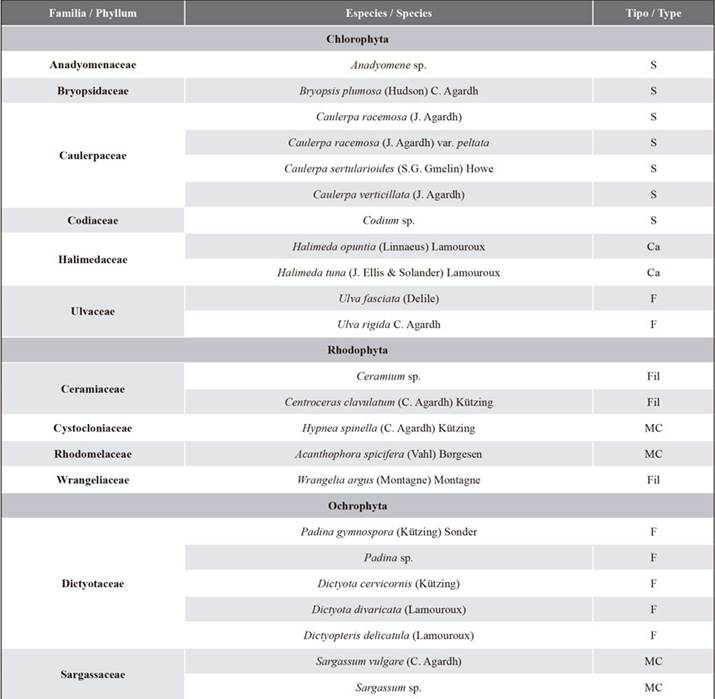
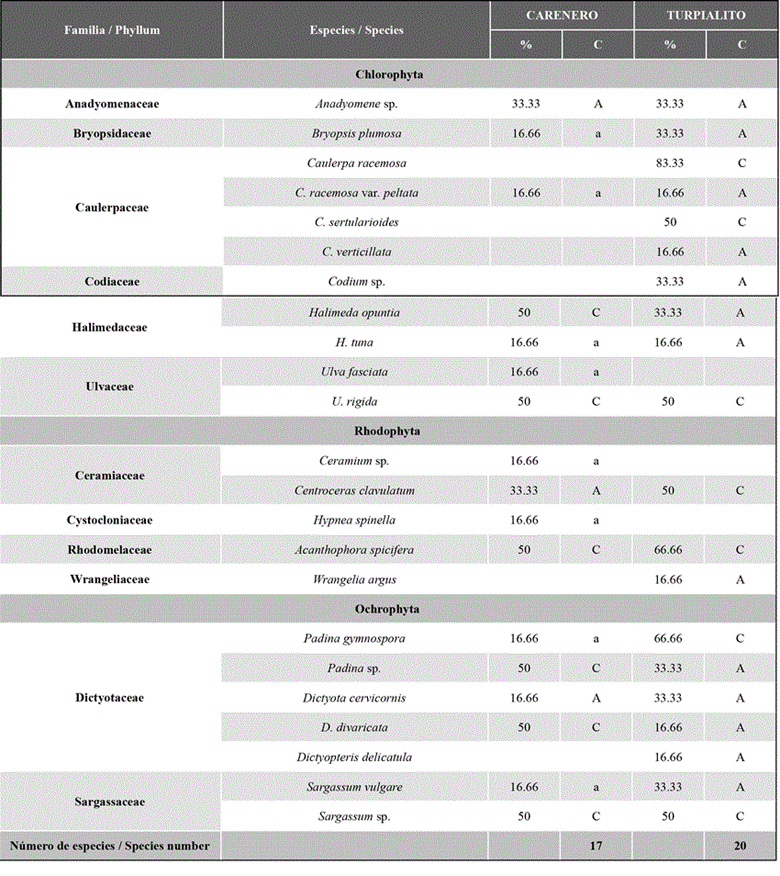
En total se identificaron 23 especies de macroalgas agrupadas en 12 familias: Chlorophyta (11), Ochrophyta (7) y Rhodophyta (5), distribuyéndose según sus morfotipos funcionales en siete foliáceas, siete sifonales, cuatro macrofitas corticadas, tres filamentosas y dos calcáreas articuladas (Tabla 1).
Composición florística
El número de especies identificadas por ensenada fue de 20 en Turpialito y 17 en Carenero, con 14 especies comunes para ambas ensenadas. En ambas ensenadas no se registraron algas durante noviembre de 2012. En Carenero, se observaron cambios temporales en el número de especies recolectadas, encontrándose las mayores riquezas en marzo (8), mayo (9) y septiembre (10) de 2013, mientras que las estaciones 2 y 4, mostraron la mayor riqueza (9 y 11, respectivamente). En Turpialito, el número de especies identificadas no mostró cambios apreciables, registrándose la mayor riqueza en marzo (10), mientras que, en el resto de los meses, se identificaron entre ocho y nueve especies; este mismo comportamiento, fue observado entre las estaciones, donde la riqueza mostró poca variación, con valores que oscilaron entre 12 y 13 especies (Figura 6 a-b).
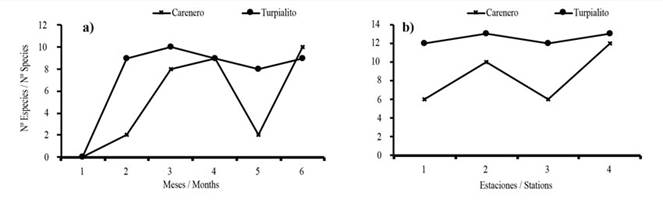
Figura 6 Variación a) bimestral y b) espacial de la riqueza de macroalgas asociadas a las raíces del mangle rojo R. mangle en las estaciones de muestreo de las ensenadas de Carenero y Turpialito (golfo de Cariaco), en el Caribe suroriental de Venezuela.
Con respecto a la Constancia, en la ensenada de Carenero seis especies fueron constantes, tres accesorias y ocho accidentales, y en la ensenada de Turpialito siete fueron constantes, siete accesorias y seis accidentales (Tabla 2).
DISCUSIÓN
La composición algal de las ensenadas Carenero y Turpialito es similar a la registrada por Barrios et al. (2004) para R. mangle en el golfo de Santa Fe, de las cuales U. fasciata, C. sertularioides, A. spicifera, S. vulgare, C. clavulatum y C. chemnitzia, fueron identificadas en este estudio. Vera (2004) identificó 30 especies de macroalgas asociadas a mangle rojo para el Parque Nacional Morrocoy, mientras que López et al. (2009) registraron 40 especies en la península de Paraguaná. De las macroalgas identificadas en este trabajo, siete son nuevos registros para el golfo de Cariaco, Anadyomene sp., C. verticillata, H. tuna, U. rigida, H. spinella, D. implexa y D. delicatula.
Los altos valores de diversidad y abundancia de algas asociadas a raíces de R. mangle en el Caribe están relacionados con la estabilidad de factores, como la salinidad, transparencia del agua, irradiación, temperatura y la moderada amplitud de mareas, además de una mayor disponibilidad de sustratos duros, entre ellos corales, piedras calizas y raíces de mangle lo cual genera una dinámica que proporciona y favorece la riqueza de la ficoflora asociada a raíces del mangle rojo (Ríos et al., 2019; Salazar-Forero et al., 2021). La composición de algas asociadas a las raíces de mangle rojo en las ensenadas de Carenero y Turpialito es característica de los manglares del Caribe (Taylor, 1960; Cordeiro-Marino et al. 1992; Salazar-Forero et al., 2021), conformada por especies que generalmente habitan en espacios protegidos con aguas calmadas y poco profundas. como es el caso de A. spicifera, que ha logrado establecerse con éxito en las raíces de mangle rojo.
En noviembre de 2012, no se encontraron algas en las raíces muestreadas, lo cual se relaciona con las fuertes lluvias caídas en ese periodo, las cuales generaron un importante flujo de agua de escorrentía y elevada turbidez en la zona, posteriormente se observó una importante recuperación de la comunidad de organismos en las raíces de mangle rojo. El número de especies identificadas fue similar en ambas ensenadas. En Turpialito no se encontraron diferencias en las especies a lo largo del muestreo encontrándose que la composición florística, es estable, a pesar de las variaciones en temperatura y salinidad. La mayor riqueza de algas se colecto en la región distal de la raíz, sin embargo, la distribución de muchas macroalgas abarca la totalidad de la misma, incluyendo la zona superior de estas, como es el caso de los géneros Ulva, Bryopsis y Centroceras, lo que sugiere la capacidad de estas especies de soportar emersiones cíclicas y desecaciones.
Sin embargo, la flora algal de Carenero mostró fluctuaciones espaciotemporales y su disposición en las raíces se registró principalmente en las porciones distales de estas a modo de penachos, observándose asociadas a estas una comunidad de invertebrados en las raíces, la cual fue visiblemente mayor a la observada en Turpialito. La composición de especies de macroalgas asociadas a los manglares depende en gran medida de la naturaleza de los organismos pioneros que colonizan el substrato.
En Carenero las especies dominantes fueron A. spicifera, H. copiosa y U. rigida, mientras que C. racemosa, A. spicifera y U. rigida, dominaron en Turpialito. Martins et al. (1999) señalan que la mayoría de las especies de estos géneros, son tolerantes a amplios rangos de salinidad, de allí su abundancia en los manglares. La dominancia de Caulerpa spp. y A. spicifera, estarían relacionadas a su tolerancia a cambios intermareales (Dawes y Mathieson, 2008), mientras que la adaptabilidad morfológica y fisiológica de muchas especies de macroalgas les permite un amplia distribución batimétrica y espacial que favorece su presencia en diferentes ambientes (Marín y Peña, 2016).
Acanthophora spicifera, es indicadora de alto contenido de materia orgánica y tiende a ubicarse en los extremos de las raíces de R. mangle (Barrios et al., 2004), debido a su estructura cespitosa y desarrollo de un disco basal, puede aprovechar para su crecimiento los extremos de las raíces, que por su reducida área constituyen zonas de menor competencia con organismos incrustantes que necesitan más superficie para establecerse. No obstante, el crecimiento estolonìfero y abundancia de proyecciones rizoidales de Caulerpa, le permiten adherirse a lo largo de la raíz del mangle. En el caso de Ulva, los representantes de este género se encuentran distribuidos ampliamente a nivel mundial y tienden a ser organismos oportunistas que colonizan con éxito los sustratos verticales como las raíces de mangle. Adicionalmente, se puede agregar que U. fasciata pudiera estar indicando algún grado de contaminación en Carenero ya que esta especie, y en general todas las ulvales, son características de zonas eutróficas (Van den Hoek et al., 1998; Lotze y Schranm, 2000).
El porcentaje de especies constantes en ambas ensenadas fue similar, pero al contrastar Carenero con Turpialito, se observó una mayor presencia de especies accidentales en esta última ensenada. Barrios et al. (2004) señalan que es posible encontrar en las comunidades de algas asociadas a manglar, especies no típicas o accidentales. La disponibilidad y viabilidad de los propágulos y esporas, transportadas por las corrientes y el oleaje, así como la adecuación y tipo de sustrato, son factores influyentes en la distribución y conectividad de poblaciones de organismos sésiles (Gaylord et al., 2006). Otro factor determinante en esta diferencia es que en Turpialito existe una mayor variedad de ambientes cercanos a los manglares, como fondos blandos arenosos y fango limosos, parches coralinos, praderas de T. testudinum, áreas rocosas, estructuras antropogénicas como muelle y sistemas de cultivo, que permiten una mayor incidencia de especies que logran colonizar las raíces del manglar.
Entre las especies asociadas a raíces de R. mangle en la ensenada de Turpialito se identificaron macroalgas que son características de arrecifes y fondos blandos cercanos, como C. sertularioides y H. copiosa, lo que sugiere que la riqueza de macroalgas asociadas al mangle rojo sería el producto de la incorporación de especies de otros ambientes. Collado-Vides et al. (1995) encontraron en el sistema lagunar de Nichuptè (México) 17 especies exclusivas para las raíces de R. mangle y 35 especies de macroalgas tanto en raíces como en fondos arenosos consolidados con pastos marinos, destacando en su estudio que existen elementos morfológicos en muchas macroalgas que no limitan su distribución, lo cual permite que estas colonicen ambos substratos.
La cercanía de parches coralinos y áreas rocosas, en combinación con factores físicos y bióticos particulares, interactúan para producir la composición ficoflorística asociada a las raíces observada en dichas ensenadas. En un estudio realizado en isla Colón, provincia de Bocas del Toro, Caribe panameño, la mayoría de las macroalgas se distribuían en las zonas media y distal de las raíces que estaban siempre sumergidas, sugiriendo que muchas de las especies allí presentes, como A. spicifera y H. spinella, entre otras, colonizan las raíces de R. mangle que crecen en espacios protegidos con aguas poco agitadas y profundas de playas rocosas con arrecifes coralinos (Ríos et al., 2019).
Sin embargo, hay que considerar que no todas las especies de macroalgas comunes en estos ambientes pueden estar representadas en las raíces de estos manglares, ya sea por el alto contenido de taninos y otros productos secundarios de las raíces (Conde et al., 1995), la competencia que se genera por espacio con otros organismos durante el proceso de colonización y el frecuente sombreado de la cobertura vegetal que reduce la luz disponible. Ogden y Gladfelter (1986) indican que los manglares costeros son un componente funcional de los complejos manglar-pastos marinos-arrecifes coralinos, y aunque las interacciones entre estos ecosistemas no están claramente definidas, el complejo sistema de raíces, las macroalgas y demás organismos que las colonizan reducen el impacto de los sedimentos de escorrentía y resuspensión sobre las comunidades coralinas.
Algunos fenómenos medioambientales globales que se producen dentro del golfo de Cariaco como la surgencia costera, que ocurre entre los meses de diciembre a abril y mayo (Okuda et al., 1978), junto a otras características propias de cada ensenada, como la amplitud, profundidad, complejidad estructural de las raíces del mangle, colecta de bivalvos (p.e., ostras) por parte de los pescadores, que perturban la dinámica de las comunidades en las raíces, y la presencia de otros ecosistemas en áreas vecinas, juegan un papel importante en la distribución espacio-temporal de la ficoflora asociada a los manglares de Carenero y Turpialito. Las características topográficas, estructura y disposición de los manglares dentro de ambas ensenadas, junto a la cercanía e intercambio biológico con diferentes ambientes marinos, son fundamentales en la composición y ensamble de la ficoflora asociada a R. mangle de Carenero y Turpialito, que a pesar de estar próximas y compartir similitudes medioambientales, presentan una composición algal diferente.
AGRADECIMIENTOS
El estudio fue financiado por el Consejo de Investigación de la Universidad de Oriente-Venezuela-CI-02-030603-1970-17.
REFERENCIAS
Albornoz, O. 1988. Macroalgas marinas del estado Falcón (Venezuela). Bol. Centro Invest. Biol., 17: 1-34. [ Links ]
Aponte, M. 1985. Evaluación taxonómica de las algas marinas de la costa noreste de la Isla de Margarita. Tesis Maestría, Univ. Oriente, Inst. Oceanogr. Venezuela, Cumaná. 381 p. [ Links ]
Barrios, J. y G. García . 2013. Macroalgas asociadas a raíces de mangle de Caño Mánamo, estado Delta Amacuro, Venezuela. Bol. Inst. Oceanogr. Ven., 52 (1): 107-112. [ Links ]
Barrios, J., B. Márquez y M. Jiménez. 2004. Macroalgas asociadas a Rhizophora mangle L. en el golfo de Santa Fe, estado Sucre, Venezuela. Bol. Inst. Oceanogr. Ven., 42: 37-45. [ Links ]
Burkholder, P. and L. Almodovar. 1973. Studies on mangrove algal communities in Puerto Rico. Fla. Sci., 36: 66-74. [ Links ]
Carballo-Barrera, Y., S. Gómez, M. García y N. Gil. 2020. Catálogo de la ficoflora de Venezuela. Publicación electrónica. Univ. Central Ven., Caracas. Web Ficoflora Venezuela: https://www.ficofloravenezuela.info.ve/public/index.php. [ Links ]
Chapman, V. J. 1961. The marine algae of Jamaica. Part I. Myxophyceae and Chlorophyceae. Bull. Inst. Jamaica, 12: 1-159. [ Links ]
Chapman, V. J. 1963. The marine algae of Jamaica. Part II. Phaeophyceae and Rhodophyceae. Bull. Inst. Jamaica, 12: 1-201. [ Links ]
Collado-Vides, L., J. González-González y E. Ezcurra. 1995. Patrones de distribución ficoflorística en el sistema lagunar de Nichupte, Quintana Roo, México. Act. Bot. Mex., 31: 19-32. [ Links ]
Conde, J., C. Alarcón, S. Flores and H. Diaz. 1995. Nitrogen and tannins in mangrove leaves might explain interpopulation variations in the crab Aratus pisonii. Act Cient. Ven., 46: 303-304. [ Links ]
Cordeiro-Marino, M., M. Braga, V. Eston, M. Fujii and N. Yokoya. 1992. Mangrove macroalgal communities of Latin America: the state of art and perspectives: 51-64. In: Seeliger, U. (Ed.) Coastal plant communities of Latin America. Academic Press, New York. [ Links ]
Dawes, C. and A. Mathieson. 2008. The seaweeds of Florida. Univ. Florida. Florida. 591 p. [ Links ]
Díaz-Piferrer, M. 1970. Adiciones a la flora marina de Venezuela. Caribb. J. Sci., 10: 159-198. [ Links ]
Ellison, A. and E. Farnsworth. 1992. Belizean mangrove-root epibionts: patterns of distribution and abundance and effects on root growth. Hydrobiologia, 247: 87-98. [ Links ]
Ganesan, E. K. 1989. A catalog of benthic marine algae and seagrasses of Venezuela. Conicit, Caracas. 237 p. [ Links ]
Gaylord, B., D. Reed, P. Raimondi and L. Washburn. 2006. Macroalgal spore dispersal in coastal environments: Mechanistic insights revealed by theory and experiment. Ecol. Monogr., 76: 481-502. [ Links ]
González, A. 1977. La vegetación marina del Parque Nacional Morrocoy, estado Falcón. Acta Bot. Ven., 12: 241-246. [ Links ]
González, A. y B. Vera. 1994. Algas: 63-126. En: Manara, B. (Ed.) Flora del Parque Nacional Morrocoy. Fund. Inst. Bot. Ven., Ag. Esp. Coop. Internal., Caracas. [ Links ]
Guiry, M. and G. Guiry. 2020. AlgaeBase. World-wide electronic publication, National University of Ireland, Galway. http://www.algaebase.org. 08/09/2020 [ Links ]
Hammer, L. y F. Gessner. 1967. La taxonomía de la vegetación marina en la costa oriental de Venezuela. Bol. Inst. Oceanogr. Ven., 6(2): 186-265. [ Links ]
Hogarth, P. 2007. The biology of mangroves and seagrasses. 2nd. ed. New York, Oxford. 273 p. [ Links ]
Joly, A. 1967. Géneros de algas marinhas da costa atlántica latino-americana. Univ. São Paulo. 461 p. [ Links ]
Krebs, C. 1985. Ecology: The experimental analysis of distribution and abundance. 3rd edition. Harper and Row, New York. 800 p. [ Links ]
Laursen, W. and R. King. 2000. The distribution and abundance of mangrove macroalgae in Woolooware Bay, New South Wales, Australia. Bot. Mar., 43: 377-384. [ Links ]
Lemus, A. 1979. Las algas marinas del golfo de Paria, Venezuela. I. Chlorophyta y Phaeophyta. Bol. Inst. Oceanogr. Ven., 18: 17-36. [ Links ]
Lemus, A. 1984. Estudio taxonómico de las familias Ectocarpaceae, Sphacelariaceae y Dictyotaceae (Phaeophyta) de las costas occidentales del estado Sucre, Venezuela. Bol. Inst. Oceanogr. Ven., 13: 23-46. [ Links ]
Lemus, A. y J. Barrios. 2009. Macroalgas del golfo de Cariaco, Venezuela, una revisión. Bol. Inst. Oceanogr. Ven., 48(2): 121-132. [ Links ]
Littler, D. and M. Littler. 2000. Caribbean reef plants: an identification guide to the reef plants of the Caribbean, Bahamas, Florida and Gulf of Mexico. Off Shore, Washington D.C. 542 p. [ Links ]
Lobo, M. y N. Ríos. 1985. Catálogo de las algas marinas del Parque Nacional Morrocoy, estado Falcón. Ernstia, 34: 8-36. [ Links ]
López, B., B. Vera y J. Conde. 2009. Macroalgas asociadas a las raíces de Rhizophora mangle en la Península de Paraguaná, estado Falcón, Venezuela. Bol. Inst. Oceanogr. Ven., 48: 11-21. [ Links ]
Lotze H.K. and W. Schranm. 2000. Ecophysiological traits explain species dominance patterns in macroalgal blooms. J. Phycol., 36: 287-295. [ Links ]
Margalef, R. 1986. Ecología. Ediciones Omega, Barcelona. 961 p. [ Links ]
Marín, H. y E. Peña. 2016. Macroalgas bénticas de la bahía de Tumaco, Pacífico colombiano. Hidrobiológica, 26(2): 299-309. [ Links ]
Martínez-Daranas, B. 2005. Macroalgas y fanerógamas marinas asociadas a los manglares cubanos: 254-265. En: Menéndez, L. y J. Guzmán (Eds) Ecosistemas de manglar en el archipiélago cubano. Academia Cuba. [ Links ]
Martins, I., J. Oliveira, M. Flindt and J. Marques. 1999. The effect of salinity on the growth rate of the macroalgae Enteromorpha intestinalis (Chlorophyta) in the Mondego estuary (west Portugal). Act Ecol., 20: 259-265. [ Links ]
Ogden, I. and E. Gladfelter. 1986. Caribbean coastal marine productivity. UNESCO Cienc. Mar., 41, 59 p. [ Links ]
Okuda, T., J. Benítez, J. Bonillay G. Cedeño. 1978. Características hidrográficas del golfo de Cariaco, Venezuela. Bol. Inst. Oceanogr. Ven., 17(1-2): 69-88. [ Links ]
Post, E. 1936. Systematische und pflanzengeographisce notizen zur Bostrychia-Caloglossa assoziation. Rev. Algol., 9: 1-84. [ Links ]
Post, E. 1963. Zur verbreitung und ökologie der Bostrychia-Caloglossa assoziation. Int. Rev. Ges. Hydrobiol, 48: 47-152. [ Links ]
Ramírez, M. A. 1995. Recolección y colecciones científicas de macroalgas marinas: 417-428. En: Alveal, K., M.E. Ferrario, E.C. Oliveira y E. Sar. (Eds.) Manual de métodos ficológicos. Univ. Concepción, Chile. [ Links ]
Ríos, R., O. Tejada, D. Morales, E. Miranda y A. Cerrud. 2019. Comunidad de algas del manglar de playa Estrella, isla Colón, Bocas del Toro, Panamá. Rev. Mar. Cost., 11 (1): 9-29. [ Links ]
Salazar-Forero, C., B. Gavio and M. Wynne. 2021. Macroalgae associated with aerial roots of Rhizophora mangle in Islas del Rosario, Colombia, Southwestern Caribbean. Caldasia, 43(1): 94-104. [ Links ]
Siegel, S. y N. Castellan. 1994. Estadística no paramétrica aplicada a las ciencias de la conducta. Trillas, México. 437 p. [ Links ]
Steinke, T. and Y. Naidoo. 1990. Biomass of algae epiphytic on pneumatophores of the mangrove Avicennia marina in the St Lucia estuary.at three temperatures. S. Afr. J. Bot., 13: 151-160. [ Links ]
Steneck, R. and M. Dethier. 1994. A functional group approach to the structure of algal dominated communities. Oikos, 69: 476-498. [ Links ]
Taylor, W.R. 1960. Marine algae of the eastern tropical and subtropical coast of the Americas. Univ. Michigan. 870 p. [ Links ]
Van den Hoek, C., D. Mannand H. Jahns. 1998. Algae: an introduction to phycology. Cambridge Univ., Cambridge, UK. 623 p. [ Links ]
Vera, B. 2004. Estudio ficoflorístico de la comunidad de macroalgas marinas del Parque Nacional Morrocoy, estado Falcón, Venezuela. Trabajo ascenso, Fac. Cienc., Univ. Central Ven. 333 p. [ Links ]
Wynne, M. 2017. A checklist of benthic marine algae of the tropical and subtropical western Atlantic: fourth revision. Nova Hedwigia, 145: 202 p [ Links ]
Recibido: 22 de Enero de 2021; Aprobado: 11 de Octubre de 2022
 This is an open-access article distributed under the terms of the Creative Commons Attribution License
