<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0120-548X</journal-id>
<journal-title><![CDATA[Acta Biológica Colombiana]]></journal-title>
<abbrev-journal-title><![CDATA[Acta biol.Colomb.]]></abbrev-journal-title>
<issn>0120-548X</issn>
<publisher>
<publisher-name><![CDATA[Universidad Nacional de Colombia, Facultad de Ciencias, Departamento de Biología]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0120-548X2007000300007</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[PLASTICIDAD FENOTÍPICA DE Lippia alba Y Lippia origanoides (VERBENACEAE) EN RESPUESTA A LA DISPONIBILIDAD DE LUZ]]></article-title>
<article-title xml:lang="en"><![CDATA[Phenotypic Plasticity of Lippia alba and Lippia origanoides (Vervenaceae) in Response to Availability of Light]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[PARRA TORRES]]></surname>
<given-names><![CDATA[EDWIN]]></given-names>
</name>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[RODRÍGUEZ LÓPEZ]]></surname>
<given-names><![CDATA[NELSON]]></given-names>
</name>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad Industrial de Santander Facultad de Ciencias Escuela de Biología]]></institution>
<addr-line><![CDATA[Bucaramanga ]]></addr-line>
<country>Colombia</country>
</aff>
<pub-date pub-type="pub">
<day>31</day>
<month>12</month>
<year>2007</year>
</pub-date>
<pub-date pub-type="epub">
<day>31</day>
<month>12</month>
<year>2007</year>
</pub-date>
<volume>12</volume>
<fpage>91</fpage>
<lpage>102</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://www.scielo.org.co/scielo.php?script=sci_arttext&amp;pid=S0120-548X2007000300007&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.co/scielo.php?script=sci_abstract&amp;pid=S0120-548X2007000300007&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.co/scielo.php?script=sci_pdf&amp;pid=S0120-548X2007000300007&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[La distribución de la especies es usualmente relacionada con la magnitud de la plasticidad fenotípica (PF). Con el fin de examinar la posible relación entre la magnitud de la PF y la amplitud ecológica en respuesta a la disponibilidad de luz, este trabajo evaluó la PF a través de la ontogenia en clones de Lippia alba y Lippia origanoides, especies congenéricas que presentan diferencias en su distribución. Clones de cada especie fueron distribuidos aleatoriamente en tres tratamientos, baja (33%), media (53%), y alta (100%) disponibilidad lumínica. Se evaluó la PF de caracteres morfológicos y de asignación de biomasa a través de la ontogenia por medio de un análisis de varianza (ANAVA) y la comparación interespecífica se realizó a través del índice de plasticidad fenotípica (RDPI). L. alba y L. origanoides presentaron variación de la plasticidad a través de la ontogenia en varios de los caracteres estudiados. La comparación interespecífica a través del RDPI mostró que la mayor PF de L. alba sobre L. origanoides en algún estado de la ontogenia no fue consistente ni uniforme a través de esta. Estos resultados sugieren una débil asociación entre la magnitud de la PF en respuesta a la disponibilidad lumínica. Además, indican que la mayor distribución de L. alba, se debe a un mayor desempeño en la tasa de crecimiento relativa y consecuentemente a una mayor acumulación de biomasa total, que posiblemente, le permiten alcanzar rápidamente su madurez sexual y así la colonización de nuevas áreas.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[The distribution of the plant species is usually related to the magnitude of the phenotypic plasticity (PF). With the purpose of to stablish the possible relationship between the magnitude of the PF and the ecological breadth in response to light availability, the PF during the ontogeny in clones of Lippia alba and Lippia origanoides was evaluated. Both species are congeneris and show differences in their distribution. Three random treatments of light availability were set up, low (33%), medium (53%), and high (100%). The PF of morphologic and biomass allocation traits was evaluated during the ontogeny in clones of L. alba and L. origanoides through the ANOVA and the interspecific comparison were carried out through relative distance plasticity index (RDPI). L. alba and L. origanoides displayed variation of the plasticity through the ontogeny in several of the studied traits. The interspecific comparison through RDPI showed that the PF greather of L. alba in comparison to L. origanoides in some state of the ontogeny was not consistent nor uniform. These results suggest a lack association between the magnitudes of the PF in response to the availability of light. Additionally this indicate that the greater distribution of L. alba could be cause by a greater performance in the relative rate of growth and the greater accumulation of total biomass, therefore, it would likely contribute L. alba to reach its sexual maturity faster and the colonization of new areas.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Plasticidad fenotípica]]></kwd>
<kwd lng="es"><![CDATA[Lippia sp]]></kwd>
<kwd lng="es"><![CDATA[luz]]></kwd>
<kwd lng="es"><![CDATA[morfología y crecimiento]]></kwd>
<kwd lng="es"><![CDATA[distribución ecológica]]></kwd>
<kwd lng="en"><![CDATA[Phenotypic plasticity]]></kwd>
<kwd lng="en"><![CDATA[Lippia sp]]></kwd>
<kwd lng="en"><![CDATA[ecological breadth]]></kwd>
<kwd lng="en"><![CDATA[light]]></kwd>
<kwd lng="en"><![CDATA[morphology and growth]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[  <font face="verdana" size="2">     <p align="center"><b><font size="4">PLASTICIDAD FENOT&Iacute;PICA DE <i>Lippia alba </i>Y <i>Lippia origanoides </i>(VERBENACEAE) EN RESPUESTA A LA DISPONIBILIDAD DE LUZ</font></b> </p>     <p align="center"><b><font size="3">Phenotypic Plasticity of <i>Lippia alba </i>and <i>Lippia origanoides </i>(Vervenaceae) in Response to Availability of Light</font></b> </p>     <p>EDWIN PARRA TORRES<sup>1</sup>, Bi&oacute;logo; NELSON RODR&Iacute;GUEZ L&Oacute;PEZ<sup>1</sup>, M.Sc. </p>     <p><sup>1</sup>Grupo Nacional de Investigaci&oacute;n en Ecofisiolog&iacute;a y Metabolismo Vegetal Tropical. Laboratorio de Ecofisiolog&iacute;a Vegetal, Escuela de Biolog&iacute;a, Facultad de Ciencias, Universidad Industrial de Santander, Calle 9, Carrera 27, Ciudad Universitaria, Bucaramanga, Colombia. Email: <a href="mailto:edwinparra1@gmail.com">edwinparra1@gmail.com</a>, <a href="mailto:fisionel@uis.edu.co">efisionel@uis.edu.co</a> </p>     <p>Presentado el 31 de julio de 2007, aceptado el 4 de septiembre de 2007, correcciones 23 de octubre de 2007. </p> <hr size="1">     <p><b>RESUMEN</b></p>     <p>La distribuci&oacute;n de la especies es usualmente relacionada con la magnitud de la plasticidad fenot&iacute;pica (PF). Con el fin de examinar la posible relaci&oacute;n entr</b>e la magnitud de la PF y la amplitud ecol&oacute;gica en respuesta a la disponibilidad de luz, este trabajo evalu&oacute; la PF a trav&eacute;s de la ontogenia en clones de <i>Lippia alba </i>y <i>Lippia origanoides</i>, especies congen&eacute;ricas que presentan diferencias en su distribuci&oacute;n. Clones de cada especie fueron distribuidos aleatoriamente en tres tratamientos, baja (33%), media (53%), y alta (100%) disponibilidad lum&iacute;nica. Se evalu&oacute; la PF de caracteres morfol&oacute;gicos y de asignaci&oacute;n de biomasa a trav&eacute;s de la ontogenia por medio de un an&aacute;lisis de varianza (ANAVA) y la comparaci&oacute;n interespec&iacute;fica se realiz&oacute; a trav&eacute;s del &iacute;ndice de plasticidad fenot&iacute;pica (RDPI). <i>L. alba </i>y <i>L. origanoides </i>presentaron variaci&oacute;n de la plasticidad a trav&eacute;s de la ontogenia en varios de los caracteres estudiados. La comparaci&oacute;n interespec&iacute;fica a trav&eacute;s del RDPI mostr&oacute; que la mayor PF de <i>L. alba </i>sobre <i>L. origanoides </i>en alg&uacute;n estado de la ontogenia no fue consistente ni uniforme a trav&eacute;s de esta. Estos resultados sugieren una d&eacute;bil asociaci&oacute;n entre la magnitud de la PF en respuesta a la disponibilidad lum&iacute;nica. Adem&aacute;s, indican que la mayor distribuci&oacute;n de <i>L. alba</i>, se debe a un mayor desempe&ntilde;o en la tasa de crecimiento relativa y consecuentemente a una mayor acumulaci&oacute;n de biomasa total, que posiblemente, le permiten alcanzar r&aacute;pidamente su madurez sexual y as&iacute; la colonizaci&oacute;n de nuevas &aacute;reas. </p>     <p><b>Palabras clave:</b> Plasticidad fenot&iacute;pica, <i>Lippia </i>sp., luz, morfolog&iacute;a y crecimiento, distribuci&oacute;n ecol&oacute;gica</B>. </p> <hr size="1">     <p><b>ABSTRACT </b></p>     ]]></body>
<body><![CDATA[<p>The distribution of the plant species is usually related to the magnitude of th</b>e phenotypic plasticity (PF). With the purpose of to stablish the possible relationship between the magnitude of the PF and the ecological breadth in response to light availability, the PF during the ontogeny in clones of <i>Lippia alba </i>and <i>Lippia origanoides </i>was evaluated. Both species are congeneris and show differences in their distribution. Three random treatments of light availability were set up, low (33%), medium (53%), and high (100%). The PF of morphologic and biomass allocation traits was evaluated during the ontogeny in clones of <i>L. alba </i>and <i>L. origanoides </i>through the ANOVA and the interspecific comparison were carried out through relative distance plasticity index (RDPI). <i>L. alba </i>and <i>L. origanoides </i>displayed variation of the plasticity through the ontogeny in several of the studied traits. The interspecific comparison through RDPI showed that the PF greather of <i>L. alba </i>in comparison to <i>L. origanoides </i>in some state of the ontogeny was not consistent nor uniform. These results suggest a lack association between the magnitudes of the PF in response to the availability of light. Additionally this indicate that the greater distribution of <i>L. alba </i>could be cause by a greater performance in the relative rate of growth and the greater accumulation of total biomass, therefore, it would likely contribute <i>L. alba </i>to reach its sexual maturity faster and the colonization of new areas. </p>     <p><b>Key words:</b> Phenotypic plasticity, <i>Lippia </i>sp., ecological breadth, light, morphology and growth. </p> <hr size="1">     <p><b><font size="3">INTRODUCCI&Oacute;N</font> </b></p>     <p>Las plantas como organismos s&eacute;siles no pueden eludir f&aacute;cilmente las condicione</b>s ambientales desfavorables; por esa raz&oacute;n, a lo largo de su evoluci&oacute;n han desarrollado mecanismos que les permiten tolerar condiciones ambientales adversas (Brock <i>et al.</i>, 2005). Por lo tanto, muchas especies vegetales presentan modificaciones en su morfolog&iacute;a y fisiolog&iacute;a originados por los cambios en su ambiente natural (Smekens y Van Tienderen, 2001). A lo anterior se le denomina plasticidad fenot&iacute;pica (PF), definida como la capacidad que tiene un mismo genotipo para producir diferentes fenotipos en respuesta a la variaci&oacute;n ambiental (Sultan, 2001; Pigliucci, 2005). </p>     <p>Adicionalmente, la distribuci&oacute;n ecol&oacute;gica de las especies ha sido asociada con la PF, por lo que se asume que especies con una amplia distribuci&oacute;n ecol&oacute;gica tendr&iacute;an una mayor PF que especies con una limitada distribuci&oacute;n (Sultan, 1995; Alpert y Simms, 2002, Paschke <i>et al.</i>, 2003; Niinemets y Valladares 2004). Sin embargo, la hip&oacute;tesis de asociaci&oacute;n entre el rango de distribuci&oacute;n ecol&oacute;gica y PF es materia de controversia. Esa hip&oacute;tesis ha sido probada en numerosos estudios evaluando la plasticidad en un punto particular del desarrollo (<i>i.e</i>., en el estado adulto o la madurez sexual) de las plantas (Gonz&aacute;lez y Gianoli, 2004; Guan <i>et al.</i>, 2004, Griffith y Sultan, 2006). Sin embargo, algunos reportes indican que no hay una asociaci&oacute;n entre la amplitud ecol&oacute;gica y la magnitud de la plasticidad fenot&iacute;pica (Baskauf y Eichmeier, 1994; Gonz&aacute;lez y Gianoli, 2004). </p>     <p>Una causa probable por la cual no se cumple la hip&oacute;tesis planteada anteriormente, se debe al hecho que la PF puede no expresarse uniformemente a trav&eacute;s del ciclo de vida de las plantas (Schlichting y Pigliucci, 1998; McConnaughay y Coleman, 1999; Wright y McConnaughay, 2002). Por lo tanto, una prueba robusta de la hip&oacute;tesis de asociaci&oacute;n entre plasticidad y la amplitud del rango ecol&oacute;gico de las plantas deber&iacute;a involucrar la estimaci&oacute;n de la plasticidad a trav&eacute;s de la ontogenia (Wright y McConnaughay, 2002). </p>     <p>De otro lado, un factor ambiental de gran importancia que define la distribuci&oacute;n y adaptaci&oacute;n de las plantas a diferentes ambientes es la luz. Este factor abi&oacute;tico no solo es un recurso importante de energ&iacute;a, sino que tambi&eacute;n causa un est&iacute;mulo que gobierna el desarrollo de las plantas y ocasionalmente, tambi&eacute;n es un factor que produce estr&eacute;s en muchas especies vegetales (Larcher, 1995). Adem&aacute;s, la luz es un elemento del ambiente que var&iacute;a tanto temporal como espacialmente. En ese sentido, esa variaci&oacute;n ambiental es el escenario propicio para que se evidencie plasticidad entre y dentro de las especies vegetales (Bazzaz y Morse, 1991). </p>     <p><i>Lippia alba </i>y <i>Lippia origanoides</i>, especies pertenecientes a la familia Verben&aacute;ceae, son productoras de aceites esenciales con gran potencial para la industria (Stashenko <i>et al.</i>, 2003). Estas especies se diferencian especialmente por su rango de distribuci&oacute;n ya que <i>L. alba</i>, posee una amplia distribuci&oacute;n, encontr&aacute;ndose desde M&eacute;xico hasta Argentina, en lugares con alta o baja disponibilidad de luz (Woodson <i>et al.</i>, 1973). En tanto que, <i>L. origanoides</i>, es una especie dominante en ambientes desfavorables, especialmente zonas semi&aacute;ridas caracterizadas por suelos secos, pobres en nutrientes y de alta incidencia lum&iacute;nica (Albesiano <i>et al.</i>, 2003). Estas especies congen&eacute;ricas, <i>L. alba </i>y <i>L. origanoides</i>, no han sido estudiadas desde un punto de vista ecol&oacute;gico o ecofisiol&oacute;gico y son un buen modelo para probar la hip&oacute;tesis de PF asociada a distribuci&oacute;n de especies. En este trabajo, nosotros evaluamos la plasticidad fenot&iacute;pica durante la ontogenia vegetativa de clones de <i>L. alba </i>y <i>L. origanoides </i>en respuesta a la disponibilidad de luz, con el fin de establecer si existe relaci&oacute;n entre la amplitud ecol&oacute;gica y la PF en estas especies. De ese modo, en este trabajo se plantearon las siguientes preguntas: i) &iquest;Es uniforme la expresi&oacute;n de plasticidad a trav&eacute;s de la ontogenia vegetativa de estas dos especies? y ii) &iquest;Es la plasticidad de <i>L. alba </i>(con mayor distribuci&oacute;n ecol&oacute;gica) mayor que la expresada por <i>L. origanoides </i>a trav&eacute;s puntos de su ontogenia vegetativa.</p>     <p><b><font size="3">MATERIALES Y M&Eacute;TODOS</font> </b></p>     <p>El experimento fue realizado en el &aacute;rea experimental del Laboratorio de Ecofisiolog&iacute;</b>a Vegetal de la Universidad Industrial de Santander, Bucaramanga, Colombia. Se propagaron por medio de estacas, 150 clones de <i>L. alba </i>y de <i>L. origanoides</i>, respectivamente. Los clones de <i>L. alba </i>y L. origanoides, se obtuvieron a partir de plantas madre que se encontraban establecidas en la granja experimental Guatiguar&aacute; de la Universidad Industrial de Santander, ubicada en el municipio de Piedecuesta (Santander), en 6&ordm; 59&rsquo; 16, 20&rsquo;&rsquo; latitud norte y 73&ordm; 2&rsquo; 51, 66&rsquo;&rsquo; longitud oeste a una altura de 900 msnm y en la localidad de Pescadero (regi&oacute;n semi&aacute;rida del ca&ntilde;&oacute;n del r&iacute;o Chicamocha) ubicada a 6&ordm; 48&rsquo; 42, 6&rsquo;&rsquo; latitud norte y 73&ordm; 00&rsquo; 29, 6&rsquo;&rsquo; longitud oeste a una altura de 500 msnm, respectivamente. Se homogeniz&oacute; la longitud (<i>i.e.</i>, 20 cm) y el peso (<i>i.e.</i>, 4,5&plusmn;1,5 g) de las estacas utilizadas para la propagaci&oacute;n (Albuquerque, 2001; Ehlert <i>et al.</i>, 2002). Con la aparici&oacute;n de las dos primeras hojas totalmente expandidas, 20 d&iacute;as despu&eacute;s de la siembra, se procedi&oacute; a trasplantar los clones en bolsas de 3 kg (un clon por bolsa), las cuales conten&iacute;an una mezcla 1:3:1 de tierra, arena de r&iacute;o y materia org&aacute;nica, esta mezcla se mantuvo constante para las dos especies en todos los tratamientos. Los tratamientos de luz a los que se sometieron los clones de ambas especies fueron: (i) baja disponibilidad de luz (33%), (ii) media disponibilidad de luz (53%) y (iii) alta disponibilidad de luz, plena exposici&oacute;n solar (100%). El segundo y el tercer tratamiento lum&iacute;nico se obtuvo mediante la utilizaci&oacute;n de malla polisombra adecuada a una estructura de madera (McConnaughay y Coleman, 1999). Las mediciones de la disponibilidad de luz se realizaron con un sensor de radiaci&oacute;n fotosint&eacute;ticamente activa Li250 (LiCor, USA). Las temperaturas promedio d&iacute;a/noche registradas en el &aacute;rea experimental durante la ejecuci&oacute;n del experimento fueron de 30 &ordm;C/20 &ordm;C &plusmn; 1 &ordm;C. Reiteramos que los tres tratamientos lum&iacute;nicos representan tres condiciones de crecimiento diferentes, en donde la luz es el factor principal considerado en este trabajo. Aunque pudieran existir diferencias microambientales, los componentes de variaci&oacute;n se asociaron al efecto dominante de la luz. Para evitar este problema potencial, en el cual otras variables microclim&aacute;ticas pudieran interferir con los resultados obtenidos, se siguieron los siguientes criterios: i) los clones crecieron en bolsas pl&aacute;sticas usando el mismo tipo de suelo; ii) los clones se mantuvieron bajo temperatura, humedad relativa natural y a capacidad de campo en todos los tratamientos; iii) a los tratamientos se les permit&iacute;a el acceso a polinizadores y al viento, asegurando un r&eacute;gimen t&eacute;rmico m&aacute;s uniforme; y iv) los tratamientos fueron colocados en un lugar geogr&aacute;fico uniforme sin estructuras aleda&ntilde;as o &aacute;rboles que interfirieran los tratamientos a determinadas horas del d&iacute;a. </p>     ]]></body>
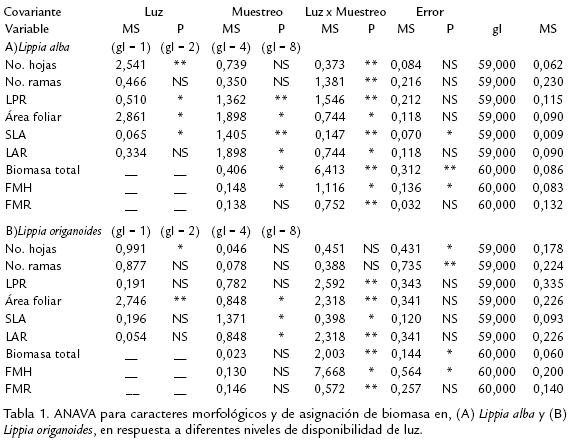
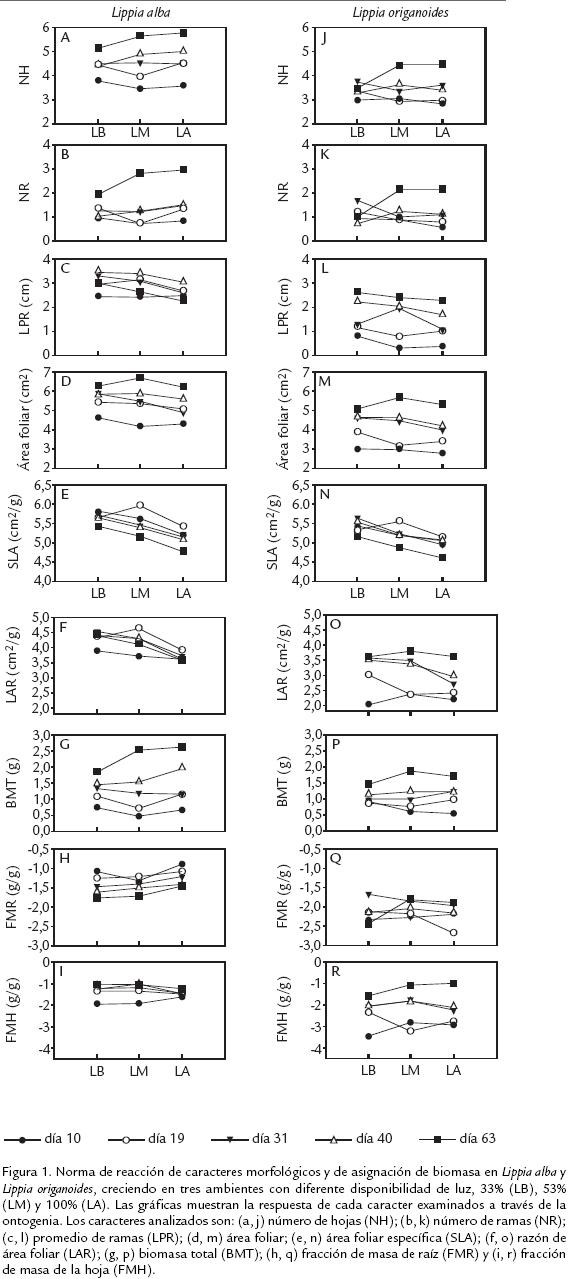
<body><![CDATA[<p><b>DISE&Ntilde;O EXPERIMENTAL, VARIABLES DE CRECIMIENTO Y DE ASIGNACI&Oacute;N DE BIOMASA </b></p>     <p>Se distribuyeron aleatoriamente 50 clones de cada especie (100 clones por tratamiento</b>) en los tres tratamientos (300 clones en total). Se realizaron cinco muestreos destructivos en cinco individuos por tratamiento de cada especie a trav&eacute;s de la ontogenia, <i>i.e.</i>, d&iacute;a 10, 19, 31, 40 y 63, despu&eacute;s del trasplante definitivo. Los clones fueron separados en hojas, tallo y ra&iacute;z. Cada uno de los &oacute;rganos de cada uno de los clones se someti&oacute; a secado en una estufa de ventilaci&oacute;n forzada a 70 &ordm;C, aproximadamente por 72 horas hasta peso constante. Se evaluaron diez variables dependientes: n&uacute;mero de hojas (NH), n&uacute;mero de ramas (NR), longitud promedio de ramas (LPR), &aacute;rea foliar (AF), &aacute;rea foliar espec&iacute;fica (SLA), raz&oacute;n de &aacute;rea foliar (LAR), fracci&oacute;n de masa seca de la ra&iacute;z (FMR), la fracci&oacute;n de masa seca foliar (FMH) y biomasa total (BMT). La medici&oacute;n del &aacute;rea foliar se realiz&oacute; a trav&eacute;s del programa <i>Eye, Leaf & Symptom Area Software </i>(Bakr, 2005), previo al secado del material foliar. La tasa de crecimiento relativo (RGR), se estim&oacute; a trav&eacute;s de la aproximaci&oacute;n funcional (Hunt y Parsons, 1974). Los datos registrados de los caracteres evaluados, excepto la RGR, se sometieron a una transformaci&oacute;n del logaritmo natural (Ln), para cumplir con las asunciones de normalidad y homogeneidad de varianzas. Posteriormente, se realiz&oacute; un an&aacute;lisis de varianza (ANAVA), para probar si exist&iacute;an diferencias significativas de los caracteres para los factores luz, muestreo y la interacci&oacute;n luz por muestreo. Las diferencias significativas de un car&aacute;cter causado por el efecto del factor luz, nos indica que se presenta PF; mientras que, un efecto significativo en la interacci&oacute;n luz por muestreo, nos indica si la PF var&iacute;a a trav&eacute;s de la ontogenia. Como algunas variables morfol&oacute;gicas var&iacute;an con el tama&ntilde;o de la planta la biomasa total se utiliz&oacute; como una covariante (Coleman <i>et al.</i>, 1994). </p>     <p><b>CUANTIFICACI&Oacute;N DE LA PLASTICIDAD Y COMPARACI&Oacute;N INTERESPEC&Iacute;FICA </b></b></p>     <p>El &iacute;ndice de plasticidad basado en distancias fenot&iacute;picas relativas (RDPI; Valladare</b>s <i>et al.</i>, 2006) fue calculado para los caracteres que presentaron plasticidad o cuya plasticidad vari&oacute; a trav&eacute;s de la ontogenia seg&uacute;n los resultados obtenidos mediante el ANAVA. Para la comparaci&oacute;n del RDPI entre ambas especies, se utilizaron aquellos caracteres que simult&aacute;neamente presentaron diferencias significativas, seg&uacute;n el ANAVA, por efecto del factor luz y la interacci&oacute;n luz por muestreo. Posteriormente, se utiliz&oacute; el test de UMannWhitney (Camargo y Rodr&iacute;guez, 2006), para la comparaci&oacute;n interespec&iacute;fica de los caracteres a los cuales se les estim&oacute; el RDPI. </p>     <p><b><font size="3">RESULTADOS</font> </b></p>     <p>La disponibilidad de luz tuvo un efecto significativo sobre la expresi&oacute;n de la PF e</b>n varios caracteres evaluados en ambas especies (<a href="#fig1">fig 1</a>). El ANAVA mostr&oacute; la luz que afect&oacute; todos los caracteres evaluados en <i>L. alba</i>, excepto en NH, NR y FMR (<a href="#tabla1">Tabla 1A</a>). Los muestreos realizados durante la ontogenia vegetativa presentaron un efecto significativo en todos los caracteres (<a href="#tabla1">Tabla 1A</a>). Mientras que, para la interacci&oacute;n luz por muestreo solo se encontraron diferencias significativas en SLA, BMT y FMH (<a href="#tabla1">Tabla 1A</a>). En el caso de <i>L. origanoides</i>, se registraron diferencias significativas en respuesta a la disponibilidad de luz solo en los caracteres AF, SLA y LAR (<a href="#tabla1">Tabla 1B</a>). El efecto de los muestreos fue significativo en todos los caracteres, excepto en NH y NR (<a href="#tabla1">Tabla 1B</a>). </p>     <p>    <center><a name="fig1"></a><img src="/img/revistas/abc/v12s1/v12s1a7f1.jpg"></center></p>     <p>    <center><a name="tabla1"></a><img src="/img/revistas/abc/v12s1/v12s1a7t1.jpg"></center></p>     ]]></body>
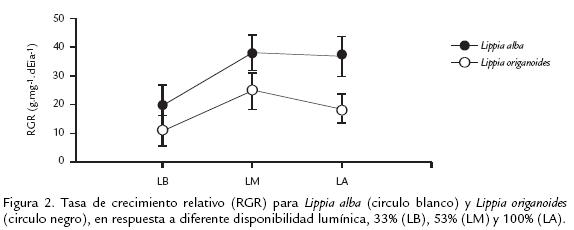
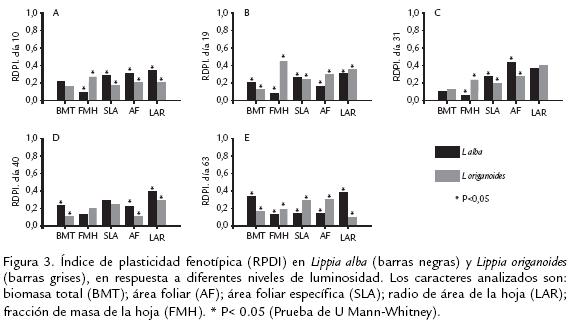
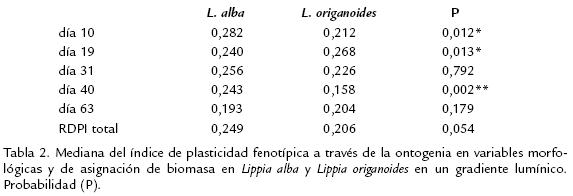
<body><![CDATA[<p>Estos dos &uacute;ltimos caracteres, mostraron diferencias significativas para la interacci&oacute;n luz por muestreo, al igual que BMT y FMH (<a href="#tabla1">Tabla 1B</a>). La RGR en <i>L. alba </i>fue mayor en todos los tratamientos de luz, comparada con la observada en <i>L. origanoides</i>. Sin embargo, solo en los tratamientos de LM y LA se presentaron diferencias estad&iacute;sticas significativas entre las especies (<a href="#fig2">fig 2</a>). </p>     <p>    <center><a name="fig2"></a><img src="/img/revistas/abc/v12s1/v12s1a7f2.jpg"></center></p>     <p>La PF total entre <i>L. alba </i>y <i>L. origanoides </i>no mostr&oacute; diferencias significativas (p=0,054) (<a href="#tabla2">Tabla 2</a> ). Adem&aacute;s, la PF no fue uniformemente expresada en ambas especies a trav&eacute;s de la ontogenia, encontr&aacute;ndose diferencias significativas en los d&iacute;as 10, 19 y 40 ( <a href="#tabla2">Tabla 2</a>; <a href="#fig3">fig 3a, b, d</a>. ). <i>L. alba </i>mostr&oacute; mayor plasticidad en los d&iacute;as 10 y 40 ( <a href="#tabla2">Tabla 2</a>; <a href="#fig3">fig 3a, d</a>. ) mientras que, <i>L. origanoides </i>solo present&oacute; una mayor plasticidad en el d&iacute;a 19 (<a href="#fig3">fig 3b</a>. ;  <a href="#tabla2">Tabla 2</a>). As&iacute; mismo, la variaci&oacute;n interespec&iacute;fica en el &iacute;ndice de plasticidad fenot&iacute;pica, arroj&oacute; diferencias significativas en varios caracteres a trav&eacute;s del desarrollo ontog&eacute;nico de ambas especies (<a href="#fig3">fig 3</a>). <i>L. origanoides</i>, mostr&oacute; mayor plasticidad en FMH a trav&eacute;s de la ontogenia (<a href="#fig3">fig 3</a>). Adem&aacute;s, expres&oacute; mayor plasticidad en AF en los d&iacute;as 19 y 63 (<a href="#fig3">fig 3b, e</a> ) y SLA en el d&iacute;a 63 (<a href="#fig3">fig 3e</a>. ). Por otro lado, <i>L. alba </i>acumul&oacute; mayor BMT al compararse con <i>L. origanoides</i>, lo cual favoreci&oacute; la mayor expresi&oacute;n de la PF para ese car&aacute;cter a trav&eacute;s de la ontogenia (<a href="#fig1">fig 1g</a>. , p; <a href="#fig3">fig 3e</a>). </p>     <p>    <center><a name="fig3"></a><img src="/img/revistas/abc/v12s1/v12s1a7f3.jpg"></center></p>     <p>    <center><a name="tabla2"></a><img src="/img/revistas/abc/v12s1/v12s1a7t2.jpg"></center></p>     <p><b><font size="3">DISCUSION</font> </b></p>     <p>La importancia ecol&oacute;gica de la capacidad de organismos s&eacute;siles como las plantas d</b>e responder a la variaci&oacute;n ambiental se apreci&oacute; a lo largo de este trabajo. Los resultados sugieren que, tanto <i>L. alba </i>como <i>L. origanoides</i>, presentaron cambios morfol&oacute;gicos t&iacute;picos de plantas que buscan maximizar la captaci&oacute;n de luz (Sultan y Bazzaz, 1993; Poorter y Nagel, 2000; Ryser y Eek, 2000; Valladares <i>et al.</i>, 2003). Lo anterior se corrobor&oacute; en este trabajo mediante la disminuci&oacute;n en el NR, NH y el aumento de LAR y SLA, este &uacute;ltimo car&aacute;cter implica que la hoja invierta menos biomasa por unidad de &aacute;rea (Poorter, 2002). Adicionalmente, no se observ&oacute; plasticidad en la asignaci&oacute;n de biomasa del sistema radicular a trav&eacute;s de la ontogenia. Resultados similares fueron encontrados por McConnaughay y Coleman (1999), quienes examinaron la asignaci&oacute;n de biomasa vegetativa en tres especies anuales, en respuesta a la disponibilidad de luz. </p>     ]]></body>
<body><![CDATA[<p>Esos autores reportaron que la respuesta de asignaci&oacute;n de biomasa en <i>Chenopodium album </i>fue concordante con la teor&iacute;a de partici&oacute;n &oacute;ptima, ya que la asignaci&oacute;n de biomasa hacia la ra&iacute;z no present&oacute; diferencias significativas entre los tratamientos de luz. No obstante, s&iacute; fue evidente el aumento de LAR en ambientes de baja disponibilidad lum&iacute;nica. </p>     <p>En este trabajo, a pesar que la PF fue evaluada a trav&eacute;s de la ontogenia, la ausencia de diferencia &iacute;nterespec&iacute;fica en la PF total estimada mediante el RDPI, demuestra que no hay una clara asociaci&oacute;n entre la amplitud ecol&oacute;gica y la PF de las especies aqu&iacute; estudiadas. Lo anterior tambi&eacute;n fue observado en estudios realizados en el estado adulto de plantas pertenecientes a los g&eacute;neros <i>Echinacea </i>sp y <i>Convolvulus </i>sp, de distribuci&oacute;n ecol&oacute;gica contrastante, en donde se analizaron caracteres fisiol&oacute;gicos y morfol&oacute;gicos, respectivamente (Baskauf y Eichmeier, 1994; Gonz&aacute;lez y Gianoli, 2004). En algunas especies anuales, se ha encontrado una mayor expresi&oacute;n de la PF en fases tempranas o tard&iacute;as de la ontogenia. Gedroc <i>et al. </i>(1996), report&oacute; que el incremento en la asignaci&oacute;n de biomasa a la ra&iacute;z en respuesta a disponibilidad de nutrientes, se present&oacute; en una fase temprana de la ontogenia en plantas de <i>Chenopodium album </i>y Abutilon theophrasti. Mientras que, en P<i>olygonum pensylvanicum</i>, sometida a un gradiente de disponibilidad lum&iacute;nica, la respuesta de LAR fue confinada a un estado avanzado de su ontogenia (McConnaughay y Coleman, 1999). En este trabajo, los resultados indican que, la expresi&oacute;n de la PF de <i>L. alba</i>, la especie con mayor distribuci&oacute;n ecol&oacute;gica, no present&oacute; un marcado patr&oacute;n en su PF comparada con la PF de <i>L.origanoides</i>, ya que no se expresa homog&eacute;neamente en estas especies a trav&eacute;s de la ontogenia. Adem&aacute;s, la PF no estuvo limitada a la fase temprana ni final de la misma. Contrario a lo planteado en nuestra hip&oacute;tesis, <i>L. origanoides </i>present&oacute; mayor PF a trav&eacute;s de la ontogenia en caracteres como, FMH, AF (<i>i.e.</i>, d&iacute;a 19 y 63) y SLA (<i>i.e.</i>, d&iacute;a 63). Lo anterior puede ser explicado en parte, debido a que esta especie se encuentra en sitios de alta incidencia lum&iacute;nica, raz&oacute;n por la cual estos caracteres poseen una mayor plasticidad, ya que estos est&aacute;n implicados en la captura de luz (Poorter y Nagel, 2000; Ryser y Eek, 2000). </p>     <p>Adem&aacute;s, estos caracteres podr&iacute;an favorecer la tolerancia a condiciones de alta luminosidad que no solo se alcanzan mediante adaptaciones fisiol&oacute;gicas de las hojas, sino tambi&eacute;n mediante determinadas caracter&iacute;sticas arquitecturales que sirven para evitar parte de la radiaci&oacute;n incidente (Valladares, 2001). De este modo, te&oacute;ricamente, <i>L. </i>origanoides, se podr&iacute;a clasificar como un ecotipo localmente adaptado, que adem&aacute;s presenta plasticidad, como lo plantea Pigliucci (2001). Sin embargo, es necesario realizar otros estudios para probar esa hip&oacute;tesis. No obstante, se conoce que <i>L. origanoides </i>tiene una alta producci&oacute;n de metabolitos secundarios, especialmente terpenoides en su h&aacute;bitat natural (BlancoMoreno, 2005). Lo anterior sugiere que la expresi&oacute;n de esa caracter&iacute;sticas por parte <i>L. origanoides</i>, sumada a la expresi&oacute;n de PF en los caracteres anteriormente mencionados, ser&iacute;an fundamentales para su supervivencia en h&aacute;bitats con una alta oferta de radiaci&oacute;n en ambientes semi&aacute;ridos o &aacute;ridos. No obstante, la capacidad que tienen algunas plantas para colonizar diversos ambientes, es posible gracias a una alta expresi&oacute;n de la PF en algunos caracteres de importancia ecol&oacute;gica (Pigliucci, 2001). En este contexto, la especie con mayor amplitud ecol&oacute;gica (<i>L. alba</i>) present&oacute; el mejor desempe&ntilde;o evidenciado mediante la mayor expresi&oacute;n de la RGR, determinada por la SLA, FMH y la TAN (tasa asimilatoria neta), en ambientes de media y alta disponibilidad lum&iacute;nica, sumado a la mayor acumulaci&oacute;n de biomasa, que podr&iacute;a explicar en parte, su mayor distribuci&oacute;n ecol&oacute;gica. La mayor expresi&oacute;n de esos caracteres permiten que las plantas reduzcan su ciclo de vegetativo y as&iacute; aseguran colonizar nuevas &aacute;reas (Poorter, 2002).</p>     <p>Bajo las condiciones experimentales utilizadas en este trabajo, no fue posible corroborar la expectativa te&oacute;rica que la magnitud de la PF en respuesta a la disponibilidad lum&iacute;nica se encuentre asociada directamente con la amplitud ecol&oacute;gica de <i>L. alba </i>y <i>L. origanoides. </i>Sin embargo, s&iacute; se corrobor&oacute; que la PF no es uniforme a trav&eacute;s de la ontogenia en ambas especies, especialmente, el predominio de la PF de <i>L. alba </i>no fue consistente a trav&eacute;s de la ontogenia comparada con la PF expresada por <i>L. origanoides </i>en respuesta a la disponibilidad de luz. Posiblemente, la amplitud ecol&oacute;gica de estas especies depende de otros factores ambientales, tales como la disponibilidad h&iacute;drica del suelo, la disponibilidad de nutrientes, la temperatura, entre otros. Este estudio deja claro la importancia de realizar la evaluaci&oacute;n a trav&eacute;s de la ontogenia de la PF, ya que &eacute;sta generalmente, es analizada en el estado adulto de las plantas, perdi&eacute;ndose as&iacute; informaci&oacute;n valiosa, ya que estos cambios se pueden presentar en primeras etapas del desarrollo. </p>     <p><b><font size="3">AGRADECIMIENTOS</font> </b></p>     <p>Lo</b>s autores agradecen a COLCIENCIASCO 432CENIVAM el financiamiento de este trabajo. A los miembros del GIEFIVET por su apoyo y colaboraci&oacute;n en la realizaci&oacute;n de este proyecto. A Iv&aacute;n Dar&iacute;o Camargo Rodr&iacute;guez por su apoyo, asesor&iacute;a y valiosos aportes. </p>     <p><b><font size="3">BIBLIOGRAF&Iacute;A</font> </b></p>     <!-- ref --><p>ALBESIANO S, RANGELCH JO, CADENA A. La vegetaci&oacute;n del ca&ntilde;&oacute;n del r&iacute;</b>o Chicamocha (Santander, Colombia). Caldasia. 2003;25:73-99 &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000050&pid=S0120-548X200700030000700001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>ALBUQUERQUE H&Aacute;. Enraizamiento de estacas de ervacidreira quimiotipo III (citrallimoneno). Hort. Brasileira. 2001;19(2):245 &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000051&pid=S0120-548X200700030000700002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>ALPERT P, SIMMS EL. The Relative Advantages of Plasticity and Fixity in Different Environments: When is it Good for a Plant to Adjust? Evol Ecol. 2002;16:285-297. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000052&pid=S0120-548X200700030000700003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>BAKR EM. A New Software for Measuring Leaf Area, and Area Damaged by <i>Tetranychus urticae </i>Koch, J Appl Entomol. 2005;129:173-175. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000053&pid=S0120-548X200700030000700004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>BASKAUF C, EICKMEIER W. Comparative Ecophysiology of A Rare and Widespread Species of Echinaceae (Asteraceae). Am J Bot. 1994;81:958-964. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000054&pid=S0120-548X200700030000700005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>BAZZAZ FA, MORSE SR. The Response of Annual Plants to Multiple Stresses. En Winnert W, Pell E, Mooney HA, editores. The Response of Plants to Multiple Stresses. San Diego (California); 1991. p. 283-299. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000055&pid=S0120-548X200700030000700006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>BLANCOMORENO DC. Composici&oacute;n y rendimiento del aceite esencial de <i>Lippia origanoides </i>en el ambiente semi&aacute;rido del ca&ntilde;&oacute;n del r&iacute;o Chicamocha, Santander, Colombia [tesis de pregrado]. Bucaramanga: Escuela de Biolog&iacute;a, Facultad de Ciencias, Universidad Industrial de Santander; 2006. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000056&pid=S0120-548X200700030000700007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>BROCK MT, WEINING C, GALEN C. A Comparison of Phenotypic Plasticity in the Native Dandelion <i>Taraxacum ceratophorum </i>and Its Invasive Congener <i>T. officinale. </i>New Phytol. 2005; 166,173-183. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000057&pid=S0120-548X200700030000700008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>CAMARGO RODR&Iacute;GUEZ ID, RODR&Iacute;GUEZ L&Oacute;PEZ N. Nuevas perspertivas para el estudio de la asignaci&oacute;n de biomasa y su relaci&oacute;n con el funcionamiento de plantas en ecosistemas neotropopicales. Acta biol. Colom. 2006;11:75-87. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000058&pid=S0120-548X200700030000700009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>COLEMAN JS, McCONNAUGHAY KDM, ACKERLEY D. Interpreting Phenotypic Variation in Plants. Trends Ecol Evol. 1994;9:187-191. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000059&pid=S0120-548X200700030000700010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>EHLERT PAD, CHAVES FCM, MING LC, da SILVA MAS. Effect of Substrata on the Development of Stem Cuttings of <i>Lippia alba </i>(mill.) n. e. br. LimoneneCarvone Chemotype. Acta Hort. 2002;(ISHS)576:259-262. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000060&pid=S0120-548X200700030000700011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>GEDROC JJ, MCCONNAUGHAY KDM, COLEMAN JS. Plasticity in root/shoot partitioning: Optimal, ontogenetic, or both?. Funct Ecol. 1996;10:44-50. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000061&pid=S0120-548X200700030000700012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>GONZ&Aacute;LEZ AV., GIANOLI E. Morphological Plasticity in Response to Shading in Three <i>Convolvulus </i>Species of Different Ecological Breadth. Acta Oecologica. 2004;26:185-190. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000062&pid=S0120-548X200700030000700013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>GRIFFITH TM, SULTAN SE. Plastic and Constant Developmental Traits Contribute to Adaptive Differences in Cooccurring Polygonum Species. Oikos. 2006;114:5-14. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000063&pid=S0120-548X200700030000700014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>HUNT R, PARSONS IT. A Computer Program for Deriving GrowthFuntions in Plant GrowthAnalysis. J Appl Ecol. 1974;11:297-304. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000064&pid=S0120-548X200700030000700015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>LARCHER W. Physiological Plant Ecology: Ecophysiology and Stress Physiology of Function Groups (3rd edition). Springer Verlag. BerlinHeidelberg; 1995. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000065&pid=S0120-548X200700030000700016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>McCONNAUGHAY KD, COLEMAN JS. Biomass Allocation in Plants: Ontogeny or Optimality? A Test Along Three Resources Gradients. Ecology. 1999;80:2581-2593. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000066&pid=S0120-548X200700030000700017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>NIINEMETS U, VALLADARES F. Photosynthetic Acclimation to Simultaneous and Interacting Environmental Stresses Along Natural Light Gradients: Optimality and Constraints. Plant Biol. 2004;6:254-268. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000067&pid=S0120-548X200700030000700018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>PASCHKE M, BERNASCONI G, SCHMID B. Population Size and Identity Influence the Reaction Norm of the Rare, Endemic Plant <i>Cochlearia bavarica </i>Across A Gradient of Environmental Stress. Evolution. 2003;57:496-508. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000068&pid=S0120-548X200700030000700019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>PIGLIUCCI M. Phenotypic Plasticity: Beyond Nature and Nurture. John Hopkins University Press, Baltimore; 2001. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000069&pid=S0120-548X200700030000700020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>PIGLIUCCI M. Evolution of Phenotypic Plasticity: Where Are We Going Now? Trends Ecol Evol. 2005;20:481-486. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000070&pid=S0120-548X200700030000700021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>POORTER H. Plant Growth and Carbon Economy. En: John Wiley & Sons, Ltd. Encyclopedia of Life Sciences. Chichester; 2002. <a href="http://www.els.net/(doi:10.1038/npg.els.0003200)." target="_blank">http://www.els.net/(doi:10.1038/npg.els.0003200).</a> &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000071&pid=S0120-548X200700030000700022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>POORTER H, NAGEL O. The Role of Biomass Allocation in the Growth Response of Plants to Different Levels of Light, CO2, Nutrients and Water: A Quantitative Review. Aust J Plant Physiol. 2000;27,595-607. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000072&pid=S0120-548X200700030000700023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>RYSER P, EEK L. Consequences of Phenotypic Plasticity <i>vs</i>. Interspecific Differences in Leaf and Root Traits for Acquisition of Aboveground and Belowground Resources. Am J Bot. 2000;87:402-411. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000073&pid=S0120-548X200700030000700024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>SCHLICHTING CD, PIGLIUCCI M. Phenotypic Evolution: A Reaction Norm Perspective. Sunderland, MA: Sinauer Associates; 1998. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000074&pid=S0120-548X200700030000700025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>SMEKENS MJ, VAN TIENDEREN MH. Genetic Variation and Plasticity of <i>Plantago coronopus </i>Under Saline Condition. Acta Oecologica. 2001;22:187-200. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000075&pid=S0120-548X200700030000700026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>STASHENKO EE, JARAMILLO BE, MART&Iacute;NEZ JR. Comparaci&oacute;n de la composici&oacute;n qu&iacute;mica y de la actividad antioxidante <i>in vitro </i>de los metabolitos secundarios de plantas de la familia Verbenaceae. Rev Acad Colomb Cienc. 2003;27:579-597. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000076&pid=S0120-548X200700030000700027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>SULTAN SE. Phenotypic Plasticity and Plant Adaptation. Act Bot Neerl. 1995;44:363-383. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000077&pid=S0120-548X200700030000700028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>SULTAN SE. Phenotypic Plasticity for Fitness Components in <i>Polygonum </i>Species of Contrasting Ecological Breadth. Ecology. 2001;82:328-343. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000078&pid=S0120-548X200700030000700029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>SULTAN SE, BAZZAZ FA. Phenotypic Plasticity in <i>Polygonum persicaria. </i>I. Diversity and Uniformity in Genotypic Norms of Reaction to Light. Evolution. 1993;47:1009-1031. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000079&pid=S0120-548X200700030000700030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>VALLADARES F. Luz y evoluci&oacute;n vegetal. Invest. y Ciencia. 2001;73-79. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000080&pid=S0120-548X200700030000700031&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>VALLADARES F, WRIGHT SJ, LASSO E, KITAJIMA K, PEARCY RW. Plastic Phenotypic Response to Light of 16 Congeneric Shrubs from <i>Panamanian rainforest. </i>Ecology. 2000;87(7):1928-1936. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000081&pid=S0120-548X200700030000700032&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>VALLADARES F, HERNANDEZ LG, DOBARRO I, GARCIAPEREZ C, SANZ R, PUGNAIRE FI. The Ratio of Leaf to Total Photosynthetic Area Influences Shade Survival and Plastic Response to Light of GreenStem Leguminous Shrub Seedlings. Ann Bot. 2003;91:1-8. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000082&pid=S0120-548X200700030000700033&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>VALLADARES F, S&Aacute;NCHEZG&Oacute;MEZ D, ZAVALA MA. Quantitative Estimation of Phenotypic Plasticity: Bridging the Gap Between the Evolutionary Concept and its Ecological Applications. J Ecol. 2006;94 (6):1103-1116. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000083&pid=S0120-548X200700030000700034&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>WRIGHT SD, McCONNAUGHAY KD. Interpreting Phenotypic Plasticity: The Importance of Ontogeny. Plant Species Biology. 2002;17:119-131. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000084&pid=S0120-548X200700030000700035&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><p>WOODSON RE, SCHERY RW, MOLDENKE HN. Flora of Panama. Part IX. Family 168. Verbenaceae. Annals of the Missouri Botanical Garden. 1973;60(1):41-148. &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000085&pid=S0120-548X200700030000700036&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> ]]></body><back>
<ref-list>
<ref id="B1">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[ALBESIANO]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
<name>
<surname><![CDATA[RANGELCH]]></surname>
<given-names><![CDATA[JO]]></given-names>
</name>
<name>
<surname><![CDATA[CADENA]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[La vegetación del cañón del río Chicamocha (Santander, Colombia )]]></article-title>
<source><![CDATA[Caldasia]]></source>
<year>2003</year>
<volume>25</volume>
<page-range>73-99</page-range></nlm-citation>
</ref>
<ref id="B2">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[ALBUQUERQUE]]></surname>
<given-names><![CDATA[HÁ]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Enraizamiento de estacas de ervacidreira quimiotipo III (citrallimoneno)]]></article-title>
<source><![CDATA[Hort. Brasileira]]></source>
<year>2001</year>
<volume>19</volume>
<numero>2</numero>
<issue>2</issue>
<page-range>245</page-range></nlm-citation>
</ref>
<ref id="B3">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[ALPERT]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[SIMMS]]></surname>
<given-names><![CDATA[EL]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The Relative Advantages of Plasticity and Fixity in Different Environments: When is it Good for a Plant to Adjust]]></article-title>
<source><![CDATA[Evol Ecol]]></source>
<year>2002</year>
<volume>16</volume>
<page-range>285-297</page-range></nlm-citation>
</ref>
<ref id="B4">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[BAKR]]></surname>
<given-names><![CDATA[EM]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A New Software for Measuring Leaf Area, and Area Damaged by Tetranychus urticae Koch]]></article-title>
<source><![CDATA[J Appl Entomol]]></source>
<year>2005</year>
<volume>129</volume>
<page-range>173-175</page-range></nlm-citation>
</ref>
<ref id="B5">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[BASKAUF]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[EICKMEIER]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Comparative Ecophysiology of A Rare and Widespread Species of Echinaceae (Asteraceae)]]></article-title>
<source><![CDATA[Am J Bot]]></source>
<year>1994</year>
<volume>81</volume>
<page-range>958-964</page-range></nlm-citation>
</ref>
<ref id="B6">
<nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[BAZZAZ]]></surname>
<given-names><![CDATA[FA]]></given-names>
</name>
<name>
<surname><![CDATA[MORSE]]></surname>
<given-names><![CDATA[SR]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The Response of Annual Plants to Multiple Stresses]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Winnert]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
<name>
<surname><![CDATA[Pell]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[Mooney]]></surname>
<given-names><![CDATA[HA]]></given-names>
</name>
</person-group>
<source><![CDATA[The Response of Plants to Multiple Stresses]]></source>
<year>1991</year>
<page-range>283-299</page-range><publisher-loc><![CDATA[San Diego^eCalifornia California]]></publisher-loc>
</nlm-citation>
</ref>
<ref id="B7">
<nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[BLANCOMORENO]]></surname>
<given-names><![CDATA[DC]]></given-names>
</name>
</person-group>
<source><![CDATA[Composición y rendimiento del aceite esencial de Lippia origanoides en el ambiente semiárido del cañón del río Chicamocha]]></source>
<year></year>
<publisher-loc><![CDATA[^eSantander Santander]]></publisher-loc>
</nlm-citation>
</ref>
<ref id="B8">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[BROCK]]></surname>
<given-names><![CDATA[MT]]></given-names>
</name>
<name>
<surname><![CDATA[WEINING]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[GALEN]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A Comparison of Phenotypic Plasticity in the Native Dandelion Taraxacum ceratophorum and Its Invasive Congener T: officinale]]></article-title>
<source><![CDATA[New Phytol]]></source>
<year>2005</year>
<volume>166</volume>
<page-range>173-183</page-range></nlm-citation>
</ref>
<ref id="B9">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[CAMARGO RODRÍGUEZ]]></surname>
<given-names><![CDATA[ID]]></given-names>
</name>
<name>
<surname><![CDATA[RODRÍGUEZ LÓPEZ]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Nuevas perspertivas para el estudio de la asignación de biomasa y su relación con el funcionamiento de plantas en ecosistemas neotropopicales]]></article-title>
<source><![CDATA[Acta biol. Colom]]></source>
<year>2006</year>
<volume>11</volume>
<page-range>75-87</page-range></nlm-citation>
</ref>
<ref id="B10">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[COLEMAN]]></surname>
<given-names><![CDATA[JS]]></given-names>
</name>
<name>
<surname><![CDATA[McCONNAUGHAY]]></surname>
<given-names><![CDATA[KDM]]></given-names>
</name>
<name>
<surname><![CDATA[ACKERLEY]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Interpreting Phenotypic Variation in Plants]]></article-title>
<source><![CDATA[Trends Ecol Evol]]></source>
<year>1994</year>
<volume>9</volume>
<page-range>187-191</page-range></nlm-citation>
</ref>
<ref id="B11">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[EHLERT]]></surname>
<given-names><![CDATA[PAD]]></given-names>
</name>
<name>
<surname><![CDATA[CHAVES]]></surname>
<given-names><![CDATA[FCM]]></given-names>
</name>
<name>
<surname><![CDATA[MING]]></surname>
<given-names><![CDATA[LC]]></given-names>
</name>
<name>
<surname><![CDATA[da SILVA]]></surname>
<given-names><![CDATA[MAS]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effect of Substrata on the Development of Stem Cuttings of Lippia alba (mill.) n. e. br. LimoneneCarvone Chemotype]]></article-title>
<source><![CDATA[Acta Hort]]></source>
<year>2002</year>
<volume>576</volume>
<page-range>259-262</page-range></nlm-citation>
</ref>
<ref id="B12">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[GEDROC]]></surname>
<given-names><![CDATA[JJ]]></given-names>
</name>
<name>
<surname><![CDATA[MCCONNAUGHAY]]></surname>
<given-names><![CDATA[KDM]]></given-names>
</name>
<name>
<surname><![CDATA[COLEMAN]]></surname>
<given-names><![CDATA[JS]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Plasticity in root/shoot partitioning: Optimal, ontogenetic, or both]]></article-title>
<source><![CDATA[Funct Ecol]]></source>
<year>1996</year>
<volume>10</volume>
<page-range>44-50</page-range></nlm-citation>
</ref>
<ref id="B13">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[GONZÁLEZ]]></surname>
<given-names><![CDATA[AV]]></given-names>
</name>
<name>
<surname><![CDATA[GIANOLI]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Morphological Plasticity in Response to Shading in Three Convolvulus Species of Different Ecological Breadth]]></article-title>
<source><![CDATA[Acta Oecologica]]></source>
<year>2004</year>
<volume>26</volume>
<page-range>185-190</page-range></nlm-citation>
</ref>
<ref id="B14">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[GRIFFITH]]></surname>
<given-names><![CDATA[TM]]></given-names>
</name>
<name>
<surname><![CDATA[SULTAN]]></surname>
<given-names><![CDATA[SE]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Plastic and Constant Developmental Traits Contribute to Adaptive Differences in Cooccurring Polygonum Species]]></article-title>
<source><![CDATA[Oikos]]></source>
<year>2006</year>
<volume>114</volume>
<page-range>5-14</page-range></nlm-citation>
</ref>
<ref id="B15">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[HUNT]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[PARSONS]]></surname>
<given-names><![CDATA[IT]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[A Computer Program for Deriving GrowthFuntions in Plant GrowthAnalysis]]></article-title>
<source><![CDATA[J Appl Ecol]]></source>
<year>1974</year>
<volume>11</volume>
<page-range>297-304</page-range></nlm-citation>
</ref>
<ref id="B16">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[LARCHER]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Physiological Plant Ecology: Ecophysiology and Stress Physiology of Function Groups (3rd edition)]]></article-title>
<source><![CDATA[Springer Verlag]]></source>
<year>1995</year>
<publisher-name><![CDATA[BerlinHeidelberg]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B17">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[McCONNAUGHAY]]></surname>
<given-names><![CDATA[KD]]></given-names>
</name>
<name>
<surname><![CDATA[COLEMAN]]></surname>
<given-names><![CDATA[JS]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Biomass Allocation in Plants: Ontogeny or Optimality? A Test Along Three Resources Gradients]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>1999</year>
<volume>80</volume>
<page-range>2581-2593</page-range></nlm-citation>
</ref>
<ref id="B18">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[NIINEMETS]]></surname>
<given-names><![CDATA[U]]></given-names>
</name>
<name>
<surname><![CDATA[VALLADARES]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Photosynthetic Acclimation to Simultaneous and Interacting Environmental Stresses Along Natural Light Gradients: Optimality and Constraints]]></article-title>
<source><![CDATA[Plant Biol]]></source>
<year>2004</year>
<volume>6</volume>
<page-range>254-268</page-range></nlm-citation>
</ref>
<ref id="B19">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[PASCHKE]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
<name>
<surname><![CDATA[BERNASCONI]]></surname>
<given-names><![CDATA[G]]></given-names>
</name>
<name>
<surname><![CDATA[SCHMID]]></surname>
<given-names><![CDATA[B]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Population Size and Identity Influence the Reaction Norm of the Rare, Endemic Plant Cochlearia bavarica Across A Gradient of Environmental Stress]]></article-title>
<source><![CDATA[Evolution]]></source>
<year>2003</year>
<volume>57</volume>
<page-range>496-508</page-range></nlm-citation>
</ref>
<ref id="B20">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[PIGLIUCCI]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<source><![CDATA[Phenotypic Plasticity: Beyond Nature and Nurture]]></source>
<year>2001</year>
<publisher-loc><![CDATA[Baltimore ]]></publisher-loc>
<publisher-name><![CDATA[John Hopkins University Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B21">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[PIGLIUCCI]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Evolution of Phenotypic Plasticity: Where Are We Going Now]]></article-title>
<source><![CDATA[Trends Ecol Evol]]></source>
<year>2005</year>
<volume>20</volume>
<page-range>481-486</page-range></nlm-citation>
</ref>
<ref id="B22">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[POORTER]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Plant Growth and Carbon Economy]]></article-title>
<source><![CDATA[Encyclopedia of Life Sciences]]></source>
<year>2002</year>
<publisher-loc><![CDATA[Chichester ]]></publisher-loc>
<publisher-name><![CDATA[John Wiley & Sons, Ltd]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B23">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[POORTER]]></surname>
<given-names><![CDATA[H]]></given-names>
</name>
<name>
<surname><![CDATA[NAGEL]]></surname>
<given-names><![CDATA[O]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The Role of Biomass Allocation in the Growth Response of Plants to Different Levels of Light, CO2, Nutrients and Water: A Quantitative Review]]></article-title>
<source><![CDATA[Aust J Plant Physiol]]></source>
<year>2000</year>
<volume>27</volume>
<page-range>595-607</page-range></nlm-citation>
</ref>
<ref id="B24">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[RYSER]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
<name>
<surname><![CDATA[EEK]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Consequences of Phenotypic Plasticity vs. Interspecific Differences in Leaf and Root Traits for Acquisition of Aboveground and Belowground Resources]]></article-title>
<source><![CDATA[Am J Bot]]></source>
<year>2000</year>
<volume>87</volume>
<page-range>402-411</page-range></nlm-citation>
</ref>
<ref id="B25">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[SCHLICHTING]]></surname>
<given-names><![CDATA[CD]]></given-names>
</name>
<name>
<surname><![CDATA[PIGLIUCCI]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Phenotypic Evolution: A Reaction Norm Perspective]]></article-title>
<source><![CDATA[]]></source>
<year>1998</year>
<publisher-loc><![CDATA[Sunderland ]]></publisher-loc>
<publisher-name><![CDATA[Sinauer Associates]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B26">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[SMEKENS]]></surname>
<given-names><![CDATA[MJ]]></given-names>
</name>
<name>
<surname><![CDATA[VAN TIENDEREN]]></surname>
<given-names><![CDATA[MH]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Genetic Variation and Plasticity of Plantago coronopus Under Saline Condition]]></article-title>
<source><![CDATA[Acta Oecologica]]></source>
<year>2001</year>
<volume>22</volume>
<page-range>187-200</page-range></nlm-citation>
</ref>
<ref id="B27">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[STASHENKO]]></surname>
<given-names><![CDATA[EE]]></given-names>
</name>
<name>
<surname><![CDATA[JARAMILLO]]></surname>
<given-names><![CDATA[BE]]></given-names>
</name>
<name>
<surname><![CDATA[MARTÍNEZ]]></surname>
<given-names><![CDATA[JR]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Comparación de la composición química y de la actividad antioxidante in vitro de los metabolitos secundarios de plantas de la familia Verbenaceae]]></article-title>
<source><![CDATA[Rev Acad Colomb Cienc]]></source>
<year>2003</year>
<volume>27</volume>
<page-range>579-597</page-range></nlm-citation>
</ref>
<ref id="B28">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[SULTAN]]></surname>
<given-names><![CDATA[SE]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Phenotypic Plasticity and Plant Adaptation]]></article-title>
<source><![CDATA[Act Bot Neerl]]></source>
<year>1995</year>
<volume>44</volume>
<page-range>363-383</page-range></nlm-citation>
</ref>
<ref id="B29">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[SULTAN]]></surname>
<given-names><![CDATA[SE]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Phenotypic Plasticity for Fitness Components in Polygonum Species of Contrasting Ecological Breadth]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>2001</year>
<volume>82</volume>
<page-range>328-343</page-range></nlm-citation>
</ref>
<ref id="B30">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[SULTAN]]></surname>
<given-names><![CDATA[SE]]></given-names>
</name>
<name>
<surname><![CDATA[BAZZAZ]]></surname>
<given-names><![CDATA[FA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Phenotypic Plasticity in Polygonum persicaria. I. Diversity and Uniformity in Genotypic Norms of Reaction to Light]]></article-title>
<source><![CDATA[Evolution]]></source>
<year>1993</year>
<volume>47</volume>
<page-range>1009-1031</page-range></nlm-citation>
</ref>
<ref id="B31">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[VALLADARES]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Luz y evolución vegetal]]></article-title>
<source><![CDATA[Invest. y Ciencia]]></source>
<year>2001</year>
<page-range>73-79</page-range></nlm-citation>
</ref>
<ref id="B32">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[VALLADARES]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
<name>
<surname><![CDATA[WRIGHT]]></surname>
<given-names><![CDATA[SJ]]></given-names>
</name>
<name>
<surname><![CDATA[LASSO]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[KITAJIMA]]></surname>
<given-names><![CDATA[K]]></given-names>
</name>
<name>
<surname><![CDATA[PEARCY]]></surname>
<given-names><![CDATA[RW]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Plastic Phenotypic Response to Light of 16 Congeneric Shrubs from Panamanian rainforest]]></article-title>
<source><![CDATA[Ecology]]></source>
<year>2000</year>
<volume>87</volume>
<numero>7</numero>
<issue>7</issue>
<page-range>1928-1936</page-range></nlm-citation>
</ref>
<ref id="B33">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[VALLADARES]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
<name>
<surname><![CDATA[HERNANDEZ]]></surname>
<given-names><![CDATA[LG]]></given-names>
</name>
<name>
<surname><![CDATA[DOBARRO]]></surname>
<given-names><![CDATA[I]]></given-names>
</name>
<name>
<surname><![CDATA[GARCIAPEREZ]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[SANZ]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[PUGNAIRE]]></surname>
<given-names><![CDATA[FI]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The Ratio of Leaf to Total Photosynthetic Area Influences Shade Survival and Plastic Response to Light of GreenStem Leguminous Shrub Seedlings]]></article-title>
<source><![CDATA[Ann Bot]]></source>
<year>2003</year>
<volume>91</volume>
<page-range>1-8</page-range></nlm-citation>
</ref>
<ref id="B34">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[VALLADARES]]></surname>
<given-names><![CDATA[F]]></given-names>
</name>
<name>
<surname><![CDATA[SÁNCHEZGÓMEZ]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[ZAVALA]]></surname>
<given-names><![CDATA[MA]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Quantitative Estimation of Phenotypic Plasticity: Bridging the Gap Between the Evolutionary Concept and its Ecological Applications]]></article-title>
<source><![CDATA[J Ecol]]></source>
<year>2006</year>
<volume>94</volume>
<numero>6</numero>
<issue>6</issue>
<page-range>1103-1116</page-range></nlm-citation>
</ref>
<ref id="B35">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[WRIGHT]]></surname>
<given-names><![CDATA[SD]]></given-names>
</name>
<name>
<surname><![CDATA[McCONNAUGHAY]]></surname>
<given-names><![CDATA[KD]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Interpreting Phenotypic Plasticity: The Importance of Ontogeny]]></article-title>
<source><![CDATA[Plant Species Biology]]></source>
<year>2002</year>
<volume>17</volume>
<page-range>119-131</page-range></nlm-citation>
</ref>
<ref id="B36">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[WOODSON]]></surname>
<given-names><![CDATA[RE]]></given-names>
</name>
<name>
<surname><![CDATA[SCHERY]]></surname>
<given-names><![CDATA[RW]]></given-names>
</name>
<name>
<surname><![CDATA[MOLDENKE]]></surname>
<given-names><![CDATA[HN]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Flora of Panama . Part IX. Family 168. Verbenaceae]]></article-title>
<source><![CDATA[Annals of the Missouri Botanical Garden]]></source>
<year>1973</year>
<volume>60</volume>
<numero>1</numero>
<issue>1</issue>
<page-range>41-148</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>