<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0366-5232</journal-id>
<journal-title><![CDATA[Caldasia]]></journal-title>
<abbrev-journal-title><![CDATA[Caldasia]]></abbrev-journal-title>
<issn>0366-5232</issn>
<publisher>
<publisher-name><![CDATA[Instituto de Ciencias Naturales, Facultad de Ciencias-Universidad Nacional de Colombia]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0366-52322012000200012</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[ESTABLECIMIENTO DEL NUTRIENTE LIMITANTE CON BASE EN LOS CAMBIOS DE LA ESTRUCTURA DEL ENSAMBLAJE FITOPLANCTÓNICO EN UN EMBALSE TROPICAL COLOMBIANO]]></article-title>
<article-title xml:lang="en"><![CDATA[Establishment of limiting nutrient based on the changes of phytoplankton assemblage structure in a tropical Colombian reservoir]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[RAMÍREZ-R]]></surname>
<given-names><![CDATA[JOHN J]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[GONZÁLEZ-B]]></surname>
<given-names><![CDATA[ROIS]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
<contrib contrib-type="author">
<name>
<surname><![CDATA[GUTIÉRREZ-V]]></surname>
<given-names><![CDATA[FERNANDO LEÓN]]></given-names>
</name>
<xref ref-type="aff" rid="A02"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad de Antioquia  ]]></institution>
<addr-line><![CDATA[Medellín ]]></addr-line>
<country>Colombia</country>
</aff>
<aff id="A02">
<institution><![CDATA[,Universidad de Antioquia  ]]></institution>
<addr-line><![CDATA[Medellín ]]></addr-line>
<country>Colombia</country>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>12</month>
<year>2012</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>12</month>
<year>2012</year>
</pub-date>
<volume>34</volume>
<numero>2</numero>
<fpage>421</fpage>
<lpage>441</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://www.scielo.org.co/scielo.php?script=sci_arttext&amp;pid=S0366-52322012000200012&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.co/scielo.php?script=sci_abstract&amp;pid=S0366-52322012000200012&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.org.co/scielo.php?script=sci_pdf&amp;pid=S0366-52322012000200012&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[En un experimento de eutrofización artificial, se adicionó Nitrógeno en tres concentraciones y Fósforo en cuatro a muestras de agua de la superficie del embalse La Fe, con el fin de establecer el nutriente limitante para el ensamblaje fitoplanctónico. El agua enriquecida se colocó en bolsas plásticas transparentes de dos litros. Las colectas se llevaron a cabo quincenalmente (n = 12) durante seis meses. Se calcularon los valores de la serie de números de Hill, los de riqueza y los de equidad. Fueron construidas curvas de rango-abundancia cuya pendiente fue hallada mediante transformación lineal de las mismas. Con el fin de confirmar las hipótesis referentes a la variabilidad entre tratamientos, se usó un diseño de bloques con los tiempos de muestreo como variable de bloqueo. Los taxones encontrados correspondieron a 2 cianobacterias, 21 clorofitas, 13 diatomeas, 1 dinoflagelado y 2 criptofitas. La fertilización ocasionó que grupos como Cryptophyta, Dinophyta, Desmidiales y Zygnematales presentaran muy poca densidad y que las Euglenophyta nunca estuvieran presentes. Los cambios en la uniformidad del ensamblaje fitoplanctónico frente con la eutrofización fueron altamente significativos (&#945; = 0.0309). La riqueza no mostró cambios significativos con el enriquecimiento (&#945; = 0.4940). Por su parte, la velocidad de respuesta coincidió en términos generales con lo mostrado por la equidad; la significancia de los cambios en las pendientes ente tratamientos fue significativa (&#945; = 0.0315). La respuesta general de las Chlorococcales al enriquecimiento fue la de incrementar su densidad a medida que la eutrofización prosperaba, para luego disminuir progresivamente hasta el último tratamiento; dicha respuesta fue altísimamente significativa (&#945; = 0.0000). Aunque las cianobacterias del orden Chroococcales se comportaron en forma similar a las Chlorococales, su conducta no fue significativa entre tratamientos (&#945; = 0.4347). Las Bacillariophyta presentaron una respuesta altísimamente significativa frente al enriquecimiento (&#945; = 0.0002), pero inicialmente se presentaron en mayor densidad en el tratamiento correspondiente al agua del embalse sin ningún enriquecimiento, para luego disminuir e incrementarse ocasionalmente en los tratamientos N1P1 y N2P1. La densidad total del ensamblaje estudiado ante el acrécimo de N y P mostró una respuesta altamente significativa (&#945; = 0.0064). Los taxones muy abundantes y abundantes mostraron la mejor respuesta en comparación con la presentada por los raros. A medida que aumentó el número de taxones muy abundantes y se incrementó la eutrofización, la pendiente tendió a aumentar. En el caso de los taxones abundantes y raros, el comportamiento fue inverso, es decir, su número decreció en la medida en que la pendiente disminuyó y hacia donde se aumentó la eutrofización. Se concluye: 1) que el enriquecimiento artificial produjo un incremento diferencial de diferentes ensambles fitoplanctónicos, siendo más evidente el efecto sobre los taxones muy abundantes; 2) que durante el periodo estudiado el nutriente limitante fue siempre el Nitrógeno; y 3) que si en el embalse La Fe se iniciara un proceso de eutrofización en la fecha en la que comenzó esta investigación, las consecuencias serían: a) el aumento de la biomasa y la densidad algal, b) la desaparición de las Euglenophyta, y la disminución ostensible de las Cryptophyta, las Dinophyta, las Desmidiales y las Zygnematales; c) una dominancia alternada entre Chlorophyta, Cyanobacteria y Bacillariophyta; d) aparición esporádica de cianobacterias filamentosas heterocitadas; e) disminución de las diatomeas, especialmente a altas concentraciones de Nitrógeno, pero incrementos de las mismas en los periodos de profundización de la capa mezclada; y f) aumento del número de taxones muy abundantes y disminución de los abundantes y raros con el incremento de la eutrofización.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[To establish the limiting nutrient for phytoplankton assemblage, in an experiment of artificial eutrophication three concentrations of Nitrogen and four of Phosphorus were added to samples of surface water from the reservoir La Fe. The enriched water was placed in clear two-liter plastic bags. The collections were made biweekly (n = 12) during six months. Values were calculated from the series of Hill's numbers, richness and evenness. Then, range-abundance curves were built and their slope was estimated using a linear transformation. To test the hypothesis concerning the variability between treatments, we used a block design with sampling times as a blocking variable. The taxa found corresponded to 2 cyanobacteria, 21 chlorophyta, 13 diatoms, 1 dinophyta and 2 criptophyta. Fertilization caused that groups such as Cryptophyta, Dinophyta, Zygnematales and Desmidiales had very little density and that Euglenophyta was never present. Changes in phytoplankton assemblage evenness compared with eutrophication were highly significant (&#945; = 0.0309). The richness did not show significant changes with enrichment (&#945; = 0.4940). The response rate expressed general agreement with that shown by the evenness; the significance of changes in slopes among treatments was significant (&#945; = 0.0315). The overall response of the Chlorococcales to the enrichment was to increase its density as eutrophication prospered, and then the decline gradually until the last treatment; the response was significantly high (&#945; = 0.0000). Although Cyanobacteria of the order Chroococales behaved similarly to Chlorococales, its behavior was not significant between treatments (&#945; = 0.4347). The Bacillariophyta presented a highly significant response in front of enrichment (&#945; = 0.0002), but initially they showed higher density in the water treatment of the reservoir without any enrichment, and then decreased and increased occasionally in N1P1 and N2P1 treatments. In front of increasing of N and P, the total density of assemblage showed a highly significant response (&#945; = 0.0064). The most abundant taxa and the abundant ones showed the best response compared with that submitted by the rare taxa. As increased the number of taxa very abundant and increased eutrophication, the slope tended to increase too. In the case of abundant and rare taxa, the behavior was reversed, i.e., their number decreased as the slope decreased and where eutrophication increased. We conclude: 1) that the artificial enrichment produced a differential increase of different phytoplankton assemblages, the effect being more evident on the most abundant taxa; 2) that during the period the limiting nutrient was always nitrogen; and 3) that if in La Fe Reservoir began a process of eutrophication on the date which started this research, the consequences would be: a) the increase in algal biomass and density, b) the disappearance of Euglenophyta, and the ostensible decline of Cryptophyta, Dinophyta, Desmidiales and Zygnematales; c) an alternating dominance between Chlorophyta, Cyanobacteria and Bacillariophyta; d) sporadic occurrence of filamentous cyanobacteria heterocitated); e) decrease in diatoms, especially at high nitrogen concentrations, but increases in same periods in the mixed layer; and f) increasing the number of most abundant taxa and decreased of abundant and rare ones with the increasing of eutrophication.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Embalse tropical]]></kwd>
<kwd lng="es"><![CDATA[nutriente limitante]]></kwd>
<kwd lng="es"><![CDATA[variabilidad temporal]]></kwd>
<kwd lng="es"><![CDATA[fitoplancton]]></kwd>
<kwd lng="en"><![CDATA[Tropical reservoir]]></kwd>
<kwd lng="en"><![CDATA[restrictive nutrient]]></kwd>
<kwd lng="en"><![CDATA[temporary variability]]></kwd>
<kwd lng="en"><![CDATA[phytoplankton]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[  <font size="2" face="verdana">      <p><font size="4">       <center>     <b>ESTABLECIMIENTO DEL  NUTRIENTE LIMITANTE CON BASE EN LOS CAMBIOS DE LA ESTRUCTURA DEL  ENSAMBLAJE FITOPLANCT&Oacute;NICO EN UN EMBALSE TROPICAL COLOMBIANO </b>    <br> </center>  </font></p> <font size="3">      <center><b>Establishment of limiting nutrient based on the changes of phytoplankton assemblage structure in a tropical Colombian reservoir</b><br/> </center> </font>      <p><b>JOHN J. RAM&Iacute;REZ-R</b>.<br/>   <b>ROIS GONZ&Aacute;LEZ-B.</b><br/> <b>FERNANDO LE&Oacute;N  GUTI&Eacute;RREZ-V. </b></p>     <p><i>Instituto de Biolog&iacute;a, Facultad de Ciencias Exactas y Naturales,  Universidad de Antioquia, Apartado 1226, Medell&iacute;n, Colombia. <a href="mailto:johnra77@gmal.com">johnra77@gmal.com</a>: </i>Autor correspondencia. <i><a href="mailto:roisgonball7@gmail.com">roisgonball7@gmail.com</a></i></p>     <p><i>Instituto de Qu&iacute;mica, Facultad de  Ciencias Exactas y Naturales, Universidad de Antioquia, Apartado 1226,  Medell&iacute;n, Colombia. <a href="mailto:gt.fcen@exactas.udea.edu.co">gt.fcen@exactas.udea.edu.co</a></i></p>     <p><b>RESUMEN</b></p>     <p>En un experimento de eutrofizaci&oacute;n    artificial, se adicion&oacute; Nitr&oacute;geno en tres concentraciones y F&oacute;sforo en cuatro    a muestras de agua de la superficie del embalse La Fe, con el fin de establecer    el nutriente limitante para el ensamblaje fitoplanct&oacute;nico. El agua enriquecida    se coloc&oacute; en bolsas pl&aacute;sticas transparentes de dos litros. Las colectas se llevaron    a cabo quincenalmente (n = 12) durante seis meses. Se calcularon los valores    de la serie de n&uacute;meros de Hill, los de riqueza y los de equidad. Fueron construidas    curvas de rango-abundancia cuya pendiente fue hallada mediante transformaci&oacute;n    lineal de las mismas. Con el fin de confirmar las hip&oacute;tesis referentes a la    variabilidad entre tratamientos, se us&oacute; un dise&ntilde;o de bloques con los tiempos    de muestreo como variable de bloqueo. Los taxones encontrados correspondieron    a 2 cianobacterias, 21 clorofitas, 13 diatomeas, 1 dinoflagelado y 2 criptofitas.    La fertilizaci&oacute;n ocasion&oacute; que grupos como Cryptophyta, Dinophyta, Desmidiales    y Zygnematales presentaran muy poca densidad y que las Euglenophyta nunca estuvieran    presentes. Los cambios en la uniformidad del ensamblaje fitoplanct&oacute;nico frente    con la eutrofizaci&oacute;n fueron altamente significativos (&#945; = 0.0309). La riqueza    no mostr&oacute; cambios significativos con el enriquecimiento (&#945; = 0.4940). Por    su parte, la velocidad de respuesta coincidi&oacute; en t&eacute;rminos generales con lo mostrado    por la equidad; la significancia de los cambios en las pendientes ente tratamientos    fue significativa (&#945; = 0.0315). La respuesta general de las Chlorococcales    al enriquecimiento fue la de incrementar su densidad a medida que la eutrofizaci&oacute;n    prosperaba, para luego disminuir progresivamente hasta el &uacute;ltimo tratamiento;    dicha respuesta fue alt&iacute;simamente significativa (&#945; = 0.0000). Aunque las    cianobacterias del orden Chroococcales se comportaron en forma similar a las    Chlorococales, su conducta no fue significativa entre tratamientos (&#945; =    0.4347). Las Bacillariophyta presentaron una respuesta alt&iacute;simamente significativa    frente al enriquecimiento (&#945; = 0.0002), pero inicialmente se presentaron    en mayor densidad en el tratamiento correspondiente al agua del embalse sin    ning&uacute;n enriquecimiento, para luego disminuir e incrementarse ocasionalmente    en los tratamientos N<sub>1</sub>P<sub>1</sub> y N<sub>2</sub>P<sub>1</sub>.    La densidad total del ensamblaje estudiado ante el acr&eacute;cimo de N y P mostr&oacute;    una respuesta altamente significativa (&#945; = 0.0064). Los taxones muy abundantes    y abundantes mostraron la mejor respuesta en comparaci&oacute;n con la presentada por    los raros. A medida que aument&oacute; el n&uacute;mero de taxones muy abundantes y se<b>    </b>increment&oacute; la eutrofizaci&oacute;n, la pendiente tendi&oacute; a aumentar. En el caso    de los taxones abundantes y raros, el comportamiento fue inverso, es decir,    su n&uacute;mero decreci&oacute; en la medida en que la pendiente disminuy&oacute; y hacia donde    se aument&oacute; la eutrofizaci&oacute;n. Se concluye: 1) que el enriquecimiento artificial    produjo un incremento diferencial de diferentes ensambles fitoplanct&oacute;nicos,    siendo m&aacute;s evidente el efecto sobre los taxones muy abundantes; 2) que durante    el periodo estudiado el nutriente limitante fue siempre el Nitr&oacute;geno; y 3) que    si en el embalse La Fe se iniciara un proceso de eutrofizaci&oacute;n en la fecha en    la que comenz&oacute; esta investigaci&oacute;n, las consecuencias ser&iacute;an: a) el aumento de    la biomasa y la densidad algal, b) la desaparici&oacute;n de las Euglenophyta, y la    disminuci&oacute;n ostensible de las Cryptophyta, las Dinophyta, las Desmidiales y    las Zygnematales; c) una dominancia alternada entre Chlorophyta, Cyanobacteria    y Bacillariophyta; d) aparici&oacute;n espor&aacute;dica de cianobacterias filamentosas heterocitadas;    e) disminuci&oacute;n de las diatomeas, especialmente a altas concentraciones de Nitr&oacute;geno,    pero incrementos de las mismas en los periodos de profundizaci&oacute;n de la capa    mezclada; y f) aumento del n&uacute;mero de taxones muy abundantes y disminuci&oacute;n de    los abundantes y raros con el incremento de la eutrofizaci&oacute;n. </p>     ]]></body>
<body><![CDATA[<p><b>Palabras    clave.</b> Embalse tropical, nutriente limitante, variabilidad temporal, fitoplancton.</p>     <p><b>ABSTRACT</b></p>     <p>To establish the limiting nutrient for phytoplankton assemblage, in an experiment    of artificial eutrophication three concentrations of Nitrogen and four of Phosphorus    were added to samples of surface water from the reservoir La Fe. The enriched    water was placed in clear two-liter plastic bags. The collections were made    biweekly (n = 12) during six months. Values were calculated from    the series of Hill's numbers, richness and evenness. Then, range-abundance curves    were built and their slope was estimated using a linear transformation. To test    the hypothesis concerning the variability between treatments, we used a block    design with sampling times as a blocking variable. The taxa found corresponded    to 2 cyanobacteria, 21 chlorophyta, 13 diatoms, 1 dinophyta and 2 criptophyta.    Fertilization caused that groups such as Cryptophyta, Dinophyta, Zygnematales    and Desmidiales had very little density and that Euglenophyta was never present.    Changes in phytoplankton assemblage evenness compared with eutrophication were    highly significant (&#945; = 0.0309). The richness did not show significant    changes with enrichment (&#945; = 0.4940). The response rate expressed general    agreement with that shown by the evenness; the significance of changes in slopes    among treatments was significant (&#945; = 0.0315). The overall response of    the Chlorococcales to the enrichment was to increase its density as eutrophication    prospered, and then the decline gradually until the last treatment; the response    was significantly high (&#945; = 0.0000). Although Cyanobacteria of the order    Chroococales behaved similarly to Chlorococales, its behavior was not significant    between treatments (&#945; = 0.4347). The Bacillariophyta presented a highly    significant response in front of enrichment (&#945; = 0.0002), but initially    they showed higher density in the water treatment of the reservoir without any    enrichment, and then decreased and increased occasionally in N<sub>1</sub>P<sub>1</sub>    and N<sub>2</sub>P<sub>1</sub> treatments. In front of increasing of N and P,    the total density of assemblage showed a highly significant response (&#945;    = 0.0064). The most abundant taxa and the abundant ones showed the best response    compared with that submitted by the rare taxa. As increased the number of taxa    very abundant and increased eutrophication, the slope tended to increase too.    In the case of abundant and rare taxa, the behavior was reversed, <i>i.e</i>.,    their number decreased as the slope decreased and where eutrophication increased.    We conclude: 1) that the artificial enrichment produced a differential increase    of different phytoplankton assemblages, the effect being more evident on the    most abundant taxa; 2) that during the period the limiting nutrient was always    nitrogen; and 3) that if in La Fe Reservoir began a process of eutrophication    on the date which started this research, the consequences would be: a) the increase    in algal biomass and density, b) the disappearance of Euglenophyta, and the    ostensible decline of Cryptophyta, Dinophyta, Desmidiales and Zygnematales;    c) an alternating dominance between Chlorophyta, Cyanobacteria and Bacillariophyta;    d) sporadic occurrence of filamentous cyanobacteria heterocitated); e) decrease    in diatoms, especially at high nitrogen concentrations, but increases in same    periods in the mixed layer; and f) increasing the number of most abundant taxa    and decreased of abundant and rare ones with the increasing of eutrophication.</p>     <p><b>Key    words.</b> Tropical reservoir, restrictive nutrient, temporary variability,    phytoplankton.</p>     <p>Recibido:      21/11/2010    <br> Aceptado:  24/09/2012     <p><b>INTRODUCCION</b></p>     <p>Cuando    los balances de los principales nutrientes son cuidadosamente manipulados en    un ambiente confinado, pueden verificarse los efectos de la eutrofizaci&oacute;n artificial    en todos los niveles tr&oacute;ficos. Los resultados obtenidos dar&aacute;n una visi&oacute;n clara    sobre el papel que cada nutriente desempe&ntilde;a sobre los organismos presentes en    el ambiente manipulado (Henry &amp; Tundisi 1982), para este caso en particular,    sobre el ensamblaje fitoplanct&oacute;nico. En la mayor&iacute;a de los casos, dicho efecto    se determina mediante la medici&oacute;n de los cambios en la concentraci&oacute;n de clorofila    a, y m&aacute;s raramente usando los s&oacute;lidos vol&aacute;tiles como evaluadores ‘directos'    de la biomasa fitoplanct&oacute;nica. Estos cambios brindan una respuesta general m&aacute;s    referida a variaciones en la biomasa del agrupamiento y no establece,    a un nivel m&aacute;s fino, los cambios en su composici&oacute;n y estructura, lo cual es    lo que se pretende realizar en esta investigaci&oacute;n.</p>     <p>El    F&oacute;sforo es a menudo citado como el nutriente limitante en el control del fitoplancton    en los lagos y embalses. No obstante, esta conclusi&oacute;n deriva mayormente de estudios    realizados en regiones templadas de Am&eacute;rica del Norte y Europa. A pesar de ello,    se ha desarrollado la idea simplista de que el crecimiento algal quedar&aacute; limitado    por el F&oacute;sforo en la mayor&iacute;a de los lagos. En realidad, algunos estudios sugieren    que los sistemas lacustres en la regi&oacute;n tropical est&aacute;n m&aacute;s frecuentemente limitados    por el Nitr&oacute;geno que por el F&oacute;sforo (Vincent <i>et al.</i> 1984), lo cual constituye    otro de los prop&oacute;sitos del presente trabajo.</p>     <p>En    los ambientes len&iacute;ticos ecuatoriales, tropicales, y templados, aqu&eacute;llos que    se estratifican estacionalmente o que tienen una mezcla limitada a los primeros    metros de la columna de agua, presentar&aacute;n la m&aacute;s severa limitaci&oacute;n de nutrientes    debido a la separaci&oacute;n de una zona de alta demanda de nutrientes y otra de acumulaci&oacute;n    de los mismos, por una frontera transicional variable que impide el paso de    material disuelto y gases; como consecuencia, en principio, los nutrientes se    acumulan en las aguas m&aacute;s profundas. Estas aguas en las zonas ecuatoriales y    tropicales presentan altas temperaturas (cuando comparadas con la temperatura    de la misma profundidad en zonas templadas) que incrementan el metabolismo bacteriano    y, consecuentemente, se produce anoxia de fondo que favorece la desnitrificaci&oacute;n    y con ello la p&eacute;rdida de una mayor proporci&oacute;n del Nitr&oacute;geno inorg&aacute;nico total    que en los lagos templados. Esta condici&oacute;n ocasionar&iacute;a una limitaci&oacute;n por Nitr&oacute;geno    en los lagos tropicales incrementada en aquellos m&aacute;s cercanos a la zona ecuatorial    por las altas temperaturas reinantes casi todo el a&ntilde;o (Lewis 2000, 2002). Un    ejemplo cl&aacute;sico de este comportamiento lo constituye el Lago Titicaca, en la    frontera entre Per&uacute; y Bolivia, en el cual la desnitrificaci&oacute;n es un proceso    dependiente de la extensi&oacute;n de la anoxia hipolimn&eacute;tica; prueba de ello es que    en 1981 una capa de agua relativamente extensa del hipolimnio era an&oacute;xica y    desprovista de nitrato mensurable (Wayne <i>et al.</i> 1991). Se puede tambi&eacute;n    comentar que el proceso de fertilizaci&oacute;n interna, ya descrito en los a&ntilde;os 60's    para el lago Washington (E.U.A), provocaba la liberaci&oacute;n de F&oacute;sforo en las capas    inferiores, favoreciendo as&iacute; la condici&oacute;n del Nitr&oacute;geno como limitante.</p>     ]]></body>
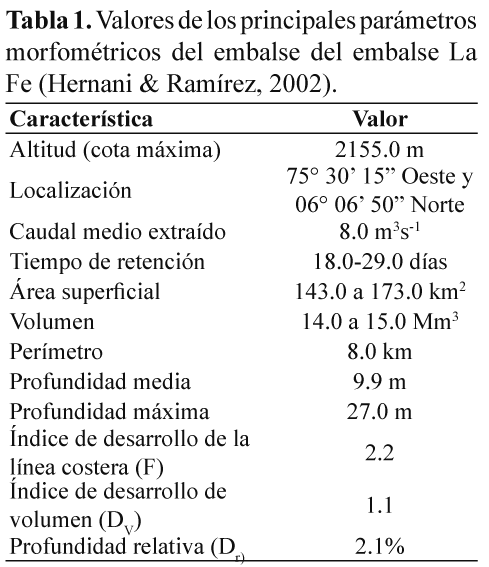
<body><![CDATA[<p>Varias investigaciones realizadas en el embalse La Fe (Hernani &amp; Ram&iacute;rez    2002, Estrada in&eacute;d., Vargas &amp; Ram&iacute;rez 2002, Arias 2007) han mostrado la    condici&oacute;n an&oacute;xica del hipolimnio en este cuerpo de agua. Vergara (in&eacute;d.) aplic&oacute;    en el a&ntilde;o 2005 el n&uacute;mero de Wedderburn para cuantificar la intrusi&oacute;n de agua    del metalinio en epilimnio del cuerpo de agua y encontr&oacute; que, para el periodo    de muestreo, la zona de presa del embalse estaba establemente estratificada    y que el agua del metalimnio penetraba en el epilimnio En el mismo a&ntilde;o, C&oacute;rdoba    (in&eacute;d.) en muestreos nictemerales efectuados durante diez meses ratific&oacute; la    condici&oacute;n an&oacute;xica hipolimn&eacute;tica en la presa del embalse, y postul&oacute; que era ocasionada    por la atelomixis parcial del cuerpo de agua que restringe la mezcla a la parte    superior del mismo. Estas investigaciones confirman la condici&oacute;n expresada por    Lewis (2000, 2002) y dejan entrever la posibilidad de que sea efectivamente    el Nitr&oacute;geno, y no el F&oacute;sforo, el nutriente limitante para el fitoplancton en    este sistema acu&aacute;tico.</p>     <p>Una    primera evidencia de esta suposici&oacute;n fue suministrada en el a&ntilde;o 2001 por la    investigaci&oacute;n de V&aacute;squez (in&eacute;d.) quien model&oacute; la conducta del F&oacute;sforo en este    sistema lacustre y concluy&oacute; que la forma predominante del mismo en el sedimento    es la org&aacute;nica y que si cesaran las cargas entrantes al embalse, el aporte de    F&oacute;sforo proveniente de este compartimiento ecosist&eacute;mico (carga interna) dada    la anoxia presente constantemente, demorar&iacute;a aproximadamente 9.2 a&ntilde;os en ser    estabilizado. Basados en esta primera aproximaci&oacute;n, no ser&iacute;a dado esperar que    en la columna de agua, el F&oacute;sforo fuese el nutriente limitante y si el Nitr&oacute;geno.  </p>     <p>Una    confirmaci&oacute;n experimental inicial de lo propuesto por Lewis y esbozado en la    investigaci&oacute;n de V&aacute;squez, fue proporcionada por Ram&iacute;rez <i>et al. </i>(2005),    en un experimento de eutrofizaci&oacute;n artificial realizado durante quince d&iacute;as    en el mes de junio (un periodo de transici&oacute;n entre los periodos lluvioso y seco)    del a&ntilde;o 2001 en la zona limn&eacute;tica del embalse. Los autores encontraron que el    nutriente limitante en ese periodo y en esa zona del cuerpo de agua era el Nitr&oacute;geno    y no el F&oacute;sforo.</p>     <p>Con base en lo propuesto por Lewis (2000, 2002), en la permanencia temporal    del patr&oacute;n de estratificaci&oacute;n y la anoxia reinante en el compartimiento hipolimn&eacute;tico    (Vergara in&eacute;d., C&oacute;rdoba in&eacute;d.), en lo concluido por V&aacute;squez (in&eacute;d.), y en lo    obtenido por Ram&iacute;rez, Vargas &amp; Guti&eacute;rrez (2005), esta investigaci&oacute;n pretende    establecer durante un periodo de seis meses, cu&aacute;l es el nutriente limitante.    Si la estratificaci&oacute;n es <i>permanentemente</i> <i>estable</i> y el hipolimnio    <i>constantemente<b> </b>an&oacute;xico</i>; y si estas condiciones <i>favorecen la    desnitrificaci&oacute;n</i> y <i>la salida de Nitr&oacute;geno en forma gaseosa</i> seg&uacute;n    lo prev&eacute; Lewis (2002); y si la densidad del fitoplancton y la de los taxones    indicadores de esta condici&oacute;n es baja en los tratamientos sin Nitr&oacute;geno y aumenta    con el enriquecimiento, entonces en el embalse La Fe el nutriente limitante    es este elemento. </p>     <p><b>MATERIALES Y M&Eacute;TODOS</b></p>     <p>El    embalse La Fe est&aacute; situado en el municipio de El Retiro (6&deg; 06'    00''N-6&deg; 06' 30''N y 75&deg; 29'    00''W-75&deg; 30' 00''W), con variaci&oacute;n    actitudinal entre 2128 y 2157 msnm, mayor informaci&oacute;n sobre el &aacute;rea de estudio    puede consultarse en Hernani &amp; Ram&iacute;rez (2002) y Vargas &amp; Ram&iacute;rez (2002).    Es un embalse de car&aacute;cter multiprop&oacute;sito, utilizado principalmente para abastecimiento    de agua potable y recreaci&oacute;n y, adicionalmente, para generaci&oacute;n de energ&iacute;a hidroel&eacute;ctrica.    El vertedero del embalse puede descargar en condiciones normales 690 m<sup>3</sup>.s<sup>-1</sup>. De su volumen total    (14-15 Mm<sup>3</sup>), 12 son utilizados para regular conjuntamente con el    bombeo del r&iacute;o Pantanillo un caudal de 8.0 m<sup>3</sup>·s<sup>-1</sup> destinado    al acueducto metropolitano del Valle de Aburr&aacute; a trav&eacute;s de la planta de tratamiento    de la Ayur&aacute;, localizada en el municipio de Envigado (Abuchaibe <i>et al.</i> 1988). Su cuenca de captaci&oacute;n se sit&uacute;a en su totalidad en la formaci&oacute;n vegetal    bmh-MB, caracterizada por una precipitaci&oacute;n media anual entre 2000 y 4000 mm (Espinal 1985).      <p>Este    embalse es abastecido por afluentes naturales que llegan por gravedad (quebradas    Las Palmas y Esp&iacute;ritu Santo que entran por el Norte; y Boquer&oacute;n, San Luis y    Potreritos que desemboca en la quebrada San Luis y penetran por el Oeste), y    por aguas importadas provenientes de las cuencas de los r&iacute;os Piedras, Buey y    Pantanillo mediante un sistema de bombeo desde el r&iacute;o Pantanillo que alimenta    al embalse durante los per&iacute;odos de estiaje. Las aguas del r&iacute;o Pantanillo son    tratadas en una planta de tratamiento secundario localizada en el municipio    de El Retiro, antes de ser bombeadas al embalse, lo que disminuye la entrada    de material particulado, pero no la del material disuelto. Otras caracter&iacute;sticas    del cuerpo de agua se presentan en la <a href="#tabla1">Tabla 1</a>. M&aacute;s informaci&oacute;n sobre el mismo    puede consultarse en Sierra &amp; Ram&iacute;rez 2000, Hernani &amp; Ram&iacute;rez (2002),    Ram&iacute;rez <i>et al. </i>(2005). </p>     <p>    <center>     <img src="/img/revistas/cal/v34n2/v34n2a12tab1.gif"><a name="tabla1"></a>  </center>        <p><b>Dise&ntilde;o    experimental. </b>Durante un periodo de seis meses y a intervalos quincenales    se tomaron muestras superficiales de agua de la zona limn&eacute;tica del embalse.    Anticipadamente el agua fue enriquecida con Nitr&oacute;geno (N) y F&oacute;sforo (P) en diferentes    concentraciones y depositada en bolsas transparentes de dos litros que pend&iacute;an    de una escalera e incubadas en la superficie del cuerpo de agua. El total de    muestreos efectuado durante los seis meses fue de doce. Las bolsas utilizadas    como limnocorrales eran de material pl&aacute;stico inerte antirreflectivo, transparente    y del menor calibre que se hall&oacute; en el mercado.</p>     ]]></body>
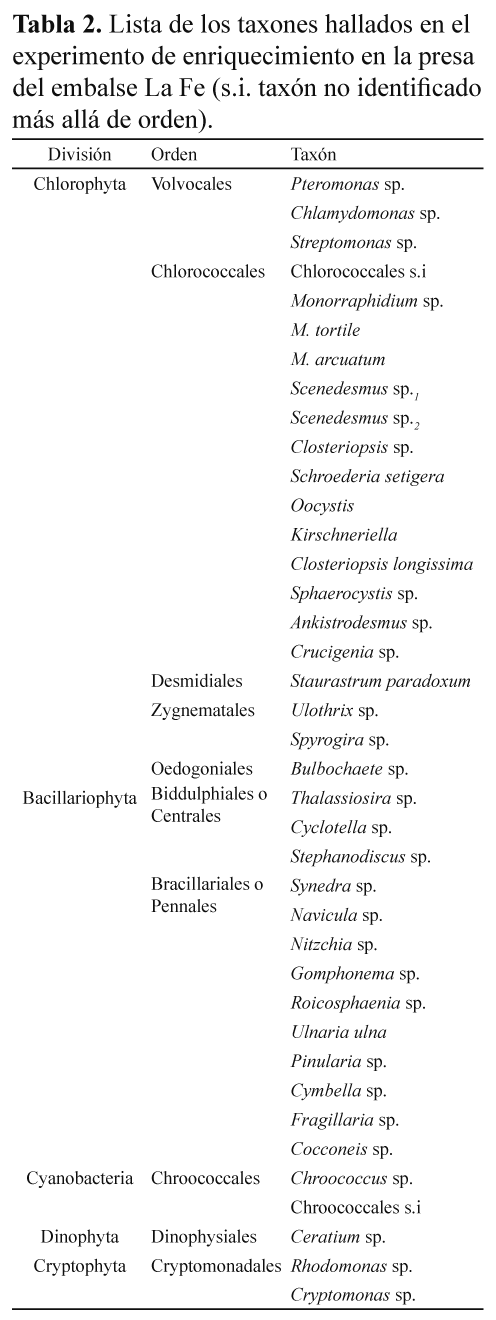
<body><![CDATA[<p>La    posici&oacute;n de las bolsas en las escaleras fue aleatorizada. Se prob&oacute; el efecto    de la adici&oacute;n de Nitr&oacute;geno (KNO<sub>3</sub>) en tres concentraciones (0 µgN.l<sup>-1</sup>    (N<sub>o</sub>); 500 µgN.l<sup>-1</sup> (N<sub>1</sub>); </b>1000 µgN.l<sup>-1</sup>    (N<sub>2</sub>)), y de la adici&oacute;n de F&oacute;sforo (KH<sub>2</sub>PO<sub>4</sub>)    en cuatro concentraciones (0 µgP.l<sup>-1 </sup>(P<sub>o</sub>); 10 µgP.l<sup>-1</sup>    (P<sub>1</sub>); 50 µgP.l<sup>-1</sup> (P<sub>2</sub>) y 100 µgP.l<sup>-1</sup>    (P<sub>3</sub>)). El primer tratamiento (N<sub>o</sub>P<sub>o</sub>) consist&iacute;a    en agua del embalse sin enriquecer. Se consideraron doce tratamientos por duplicado    para un n&uacute;mero total de 24 bolsas. Para esta investigaci&oacute;n, se analiz&oacute; solamente    una bolsa de cada tratamiento ((N<sub>o</sub>P<sub>o </sub>(0N:0P), N<sub>o</sub>P<sub>1</sub>    (0N:10P), N<sub>0</sub>P<sub>2</sub> (0N:50P), N<sub>o</sub>P<sub>3</sub> (0N:100P),    N<sub>1</sub>P<sub>o </sub>(500N:0P), N<sub>1</sub>P<sub>1 </sub>(50N:1P), N<sub>1</sub>P<sub>2    </sub>(10N:1P), N<sub>1</sub>P<sub>3</sub> (5N:1P), N<sub>2</sub>P<sub>o</sub>    (1000N:0P), N<sub>2</sub>P<sub>1</sub> (100N:1P), N<sub>2</sub>P<sub>2</sub>    (200N:1P), N<sub>2</sub>P<sub>3 </sub>(10N:1P)) para un total de doce bolsas    de las 24 iniciales. En el laboratorio se fijaron 500 ml de la muestra, previamente    agitada, con Kl-I<sub>2</sub>-&aacute;cido ac&eacute;tico. Los frascos conteniendo las muestras    se guardaron al oscuro y en fr&iacute;o. Posteriormente, los organismos contenidos    en ellos se identificaron hasta el mayor nivel taxon&oacute;mico posible en un microscopio    binocular normal utilizando material bibliogr&aacute;fico especializado. En un microscopio    invertido fueron contados 70 campos aleatorios en c&aacute;maras de sedimentaci&oacute;n de    25 ml. La abundancia se registr&oacute; como densidad en ind.l<sup>-1</sup>, considerando    individuos a los filamentos, cenobios, colonias y organismos unicelulares.</p>     <p><b>Tratamiento    de los datos. </b>Se consideraron como variables independientes al tiempo de    muestreo y a los tratamientos, y como variable de respuesta o dependiente a    la densidad de los organismos. Considerando la variabilidad de este &uacute;ltimo atributo    se evalu&oacute; el efecto del tratamiento en la densidad de los organismos del ensamblaje    fitoplanct&oacute;nico y en los cambios en la composici&oacute;n de taxones durante el tiempo    considerado. </p>     <p>Para    cada tratamiento en cada tiempo de muestreo se construyeron curvas de rango–abundancia    a las que se les hall&oacute; la pendiente mediante una transformaci&oacute;n lineal. Los    c&aacute;lculos de riqueza (N<sub>0</sub>), diversidad de Shannon &amp; Weaver (H'),    dominancia de Simpson (Ds) y equidad (J') se efectuaron con el programa Past    v. 0.2. Se computaron tambi&eacute;n los valores de la serie de n&uacute;meros de Hill (1973):    N<sub>1</sub> (taxones muy abundantes = e<sup>H'</sup>), N<sub>2</sub> (taxones    abundantes = 1/Ds) y N<sub>3</sub> {taxones raros = (N<sub>0</sub> – (muy abundantes    + abundantes)). Tanto N<sub>1</sub> como N<sub>2</sub> y N<sub>3</sub> se computaron    en Excel. Los valores negativos de los taxones raros se asumieron como cero.    Las tendencias estructurales del ensamblaje se interpretaron usando la equidad    (por ser adimensional y directamente proporcional a la diversidad) y la riqueza.  </p>     <p>Las    matrices obtenidas para cada tratamiento (filas: n taxones o 12 tratamientos    x columnas: 12 tiempos de muestreo) se integraron en el tiempo totalizando la    densidad de cada tax&oacute;n o de cada tratamiento, o calculando la media aritm&eacute;tica    de los &iacute;ndices y las pendientes. Una vez efectuados los c&aacute;lculos anteriores    y con el fin de establecer el comportamiento de los ensambles individuales y    del ensamblaje del fitoplancton frente al enriquecimiento se construyeron figuras    de densidad total = f(tratamiento), densidad total de Chlorococcales, Chroococcales    y diatomeas = f(tratamiento), equidad media = f(tratamiento), riqueza =(tratamiento)    y pendiente media = f(tratamiento). Para determinar cu&aacute;l de los tres tipos de    taxones presentes (muy abundantes, abundantes y raros) en las curvas rango-abundancia    se relacionaba mejor con la pendiente de las mismas, se efectu&oacute; un an&aacute;lisis    de regresi&oacute;n y correlaci&oacute;n lineal simple.</p>     <p>Para    corroborar la hip&oacute;tesis nula referente a la no variabilidad entre tratamientos    para la equidad, la riqueza, la densidad de Chlorococcales, la densidad de Chroococcales,    la densidad de diatomeas, la densidad total y las pendientes de las curvas rango-abundancia,    se us&oacute; un dise&ntilde;o de bloques con los tiempos de muestreo como variable de bloqueo.    Previamente fueron analizados los supuestos correspondientes al an&aacute;lisis de    varianza. La riqueza no fue transformada; las densidades de las Chlorococcales,    Chroococcales y diatomeas lo fueron con Log(x<sub>i</sub> +1); y la densidad    total y las pendientes con Log(xi). </p>     <p><b>RESULTADOS</b></p>     <p>La <a href="#tabla2">Tabla 2</a> presenta los taxones encontrados, correspondientes a 2 cianobacterias,    21 clorofitas, 13 diatomeas, 1 dinoflagelado y 2 criptofitas. La fertilizaci&oacute;n    ocasion&oacute; que grupos como Cryptophyta, Dinophyta, Desmidiales y Zygnematales    presentaran muy poca densidad y que las Euglenophyta nunca estuvieran presentes.    Los taxones m&aacute;s abundantes entre las Chlorophyta fueron Chlorococcales s.i y    los g&eacute;neros <i>Schroederia, Monorraphidium </i>y<i> Scenedesmus</i>. En las    Cyanobacteria las dominantes fueron las Chroococcales s.i. Las Bacillariophyta    presentaron como dominantes a <i>Cyclotella</i> sp., <i>Nitzschia</i> sp. y    <i>Synedra</i> sp.</p>       <p>     <center>  <img src="/img/revistas/cal/v34n2/v34n2a12tab2.gif"><a name="tabla2"></a>  </center>        <p>En la <a href="#figura1">Figura 1</a> puede observarse que la uniformidad del ensamblaje fitoplanct&oacute;nico    tendi&oacute; a una leve disminuci&oacute;n hasta el tratamiento N<sub>1</sub>P<sub>1</sub>    para luego decrecer m&aacute;s r&aacute;pidamente a medida que el enriquecimiento progresaba    hasta N<sub>1</sub>P<sub>3</sub> y estabilizarse hacia los tres &uacute;ltimos tratamientos.    Los cambios de esta variable con la eutrofizaci&oacute;n fueron altamente significativos    (F = 2.95, &#945; = 0.0309).</p>       ]]></body>
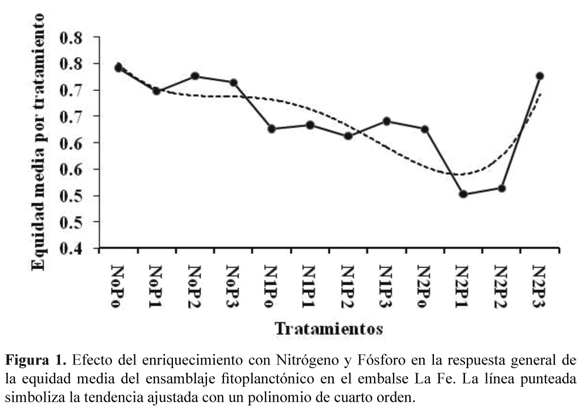
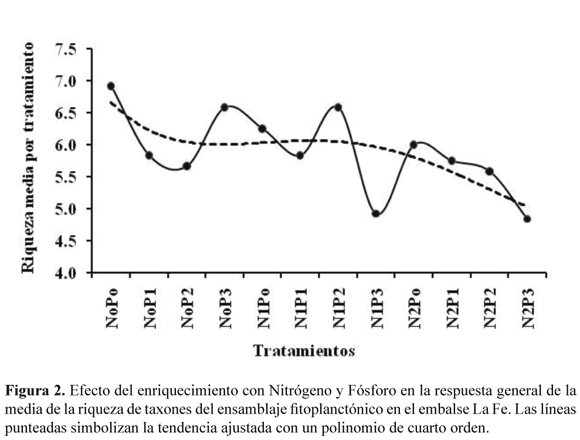
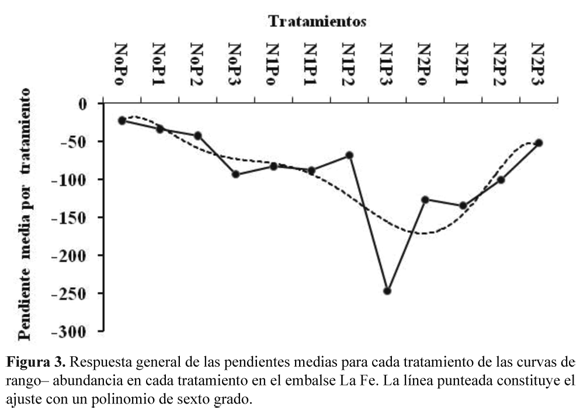
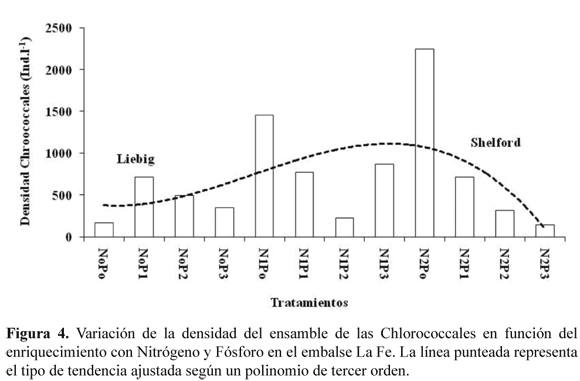
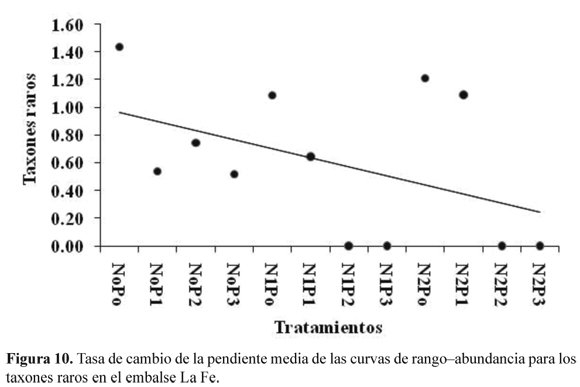
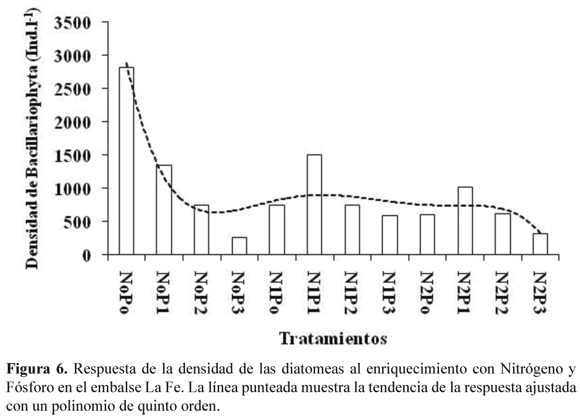
<body><![CDATA[<center>   <img src="/img/revistas/cal/v34n2/v34n2a12fig1.gif"><a name="figura1"></a>  </center>     <p>La    riqueza (<a href="#figura2">Fig. 2</a>) disminuy&oacute; hasta el tratamiento N<sub>0</sub>P<sub>2</sub> y    luego present&oacute; una directriz m&aacute;s o menos uniforme hasta el tratamiento N<sub>1</sub>P<sub>2</sub>    para posteriormente disminuir con el enriquecimiento. Sin embargo, estos cambios    no fueron considerados significativos por el an&aacute;lisis de varianza realizado    (F = 0.95, &#945; = 0.4940).</p>         <center>   <img src="/img/revistas/cal/v34n2/v34n2a12fig2.gif"><a name="figura2"></a>  </center>      <p>La    velocidad de respuesta –mostrada por la pendiente de la curva rango–abundancia    en cada tratamiento– coincidi&oacute; en t&eacute;rminos generales con lo mostrado por la    equidad, disminuyendo levemente hasta hacerse casi asint&oacute;tica a medida que se    increment&oacute; la concentraci&oacute;n de Nitr&oacute;geno en las bolsas hasta el tratamiento    N<sub>1</sub>P<sub>2</sub>, luego disminuy&oacute; hacia N<sub>1</sub>P<sub>3</sub>,    pero a partir del tratamiento N<sub>2</sub>P<sub>0</sub> la tasa de cambio aument&oacute;    hasta el &uacute;ltimo tratamiento (<a href="#figura3">Fig. 3</a>); la significancia de los cambios en las    pendientes ente tratamientos fue significativa (F = 12.67, &#945; = 0.0315).</p>          <center>   <img src="/img/revistas/cal/v34n2/v34n2a12fig3.gif"><a name="figura3"></a>  </center>      <p>La    repuesta general de las Chlorococcales al enriquecimiento fue la de incrementar    su densidad a medida que la eutrofizaci&oacute;n prosperaba, para luego disminuir progresivamente    hasta el &uacute;ltimo tratamiento (<a href="#figura4">Fig. 4</a>); </p>           <center>   <img src="/img/revistas/cal/v34n2/v34n2a12fig4.gif"><a name="figura4"></a>   </center> Dicha respuesta fue alt&iacute;simamente significativa    (F = 7.61, &#945; = 0.0000). Aunque las cianobacterias del orden Chroococcales    (<a href="#figura5">Fig. 5</a>) se comportaron en forma similar a las Chlorococales, su conducta no    fue significativa entre tratamientos (F = 1.02, &#945; = 0.4347). </p>        <center>   <img src="/img/revistas/cal/v34n2/v34n2a12fig5.gif"><a name="figura5"></a>  </center>      <p>Las    Bacillariophyta (<a href="#figura6">Fig. 6</a>) presentaron una respuesta alt&iacute;simamente significativa    frente al enriquecimiento (F = 3.66, &#945; = 0.0002), pero inicialmente se    presentaron en mayor densidad en el tratamiento correspondiente al agua del    embalse sin ning&uacute;n enriquecimiento, para luego disminuir e incrementarse ocasionalmente    en los tratamientos N<sub>1</sub>P<sub>1</sub> y N<sub>2</sub>P<sub>1</sub>.</p>         <center>   <img src="/img/revistas/cal/v34n2/v34n2a12fig6.gif"><a name="figura6"></a>  </center>      ]]></body>
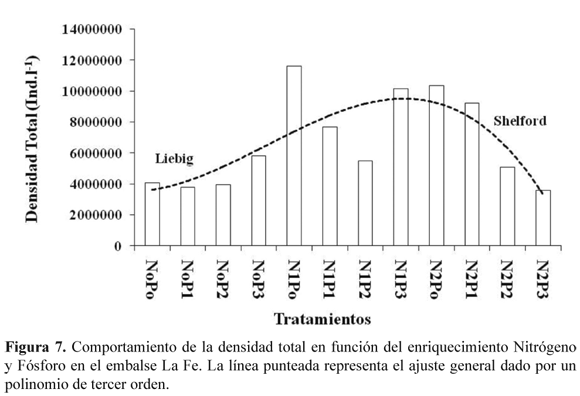
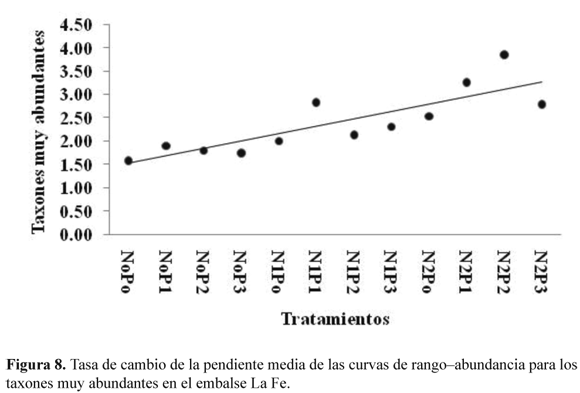
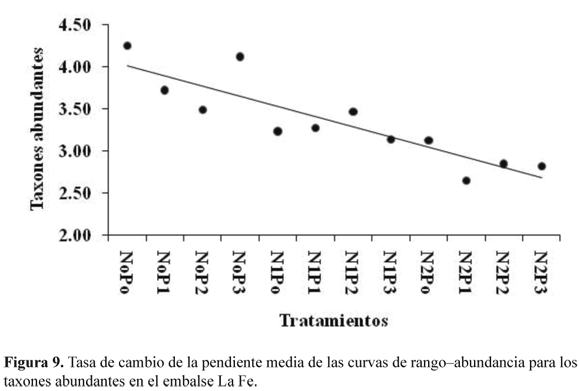
<body><![CDATA[<p>La    densidad total del ensamblaje estudiado ante el acr&eacute;cimo de N y P (<a href="#figura7">Fig. 7</a>) mostr&oacute;    una respuesta altamente significativa (F = 2.54, &#945; = 0.0064) y muy similar    a la de los Chlorococcales. </p>         <center>   <img src="/img/revistas/cal/v34n2/v34n2a12fig7.gif"><a name="figura7"></a>  </center>      <p>En    las <a href="#figura4">figuras 4</a>, <a href="#figura5">5</a> y <a href="#figura7">7</a> se muestra que hay dos momentos en las curvas: uno en el    cual aplica el principio del m&iacute;nimo de Liebig y otro en que opera el principio    de tolerancia de Shelford; sin embargo, en la <a href="#tabla5">figura 5</a> estos dos momentos no    son tan evidentes. N&oacute;tese tambi&eacute;n que, con excepci&oacute;n de la <a href="#figura7">figura 7</a>, en todas    ellas la tendencia general muestra que sus valores se incrementaron en general    hasta el tratamiento N<sub>2</sub>P<sub>0</sub> para luego disminuir progresivamente.</p>     <p>Las    <a href="#figura8">figuras 8</a>, <a href="#figura9">9</a> y <a href="#figura10">10</a> muestran la tasa de cambio de la densidad por tax&oacute;n frente    a diferentes sectores de la curva de rango-abundancia, representados por los    taxones muy abundantes, los abundantes y los raros de dicha curva. Los taxones    muy abundantes (r<sup>2 </sup>= 69.6%) y abundantes (r<sup>2 </sup>= 76.9%,    <a href="#figura8">Figs. 8</a> y <a href="#figura9">9</a>) mostraron la mejor respuesta en comparaci&oacute;n con la presentada por    los raros (r<sup>2</sup> = 20.1%) (<a href="#figura10">Fig. 10</a>). </p>       <center>     <img src="/img/revistas/cal/v34n2/v34n2a12fig8.gif" /><a name="figura8"></a>  </center>          <center>     <img src="/img/revistas/cal/v34n2/v34n2a12fig9.gif" /><a name="figura9"></a>     </center>         <center>     <img src="/img/revistas/cal/v34n2/v34n2a12fig10.gif" /><a name="figura10"></a>      </center>          <center>           <p><img src="/img/revistas/cal/v34n2/v34n2a12fig9.gif" /><a name="figura9"></a>      </p>     </center> </center> </center>   En la <a href="#figura8">figura 8</a> se observa que a    medida que aumenta el n&uacute;mero de taxones muy abundantes y se<b> </b>incrementa    la eutrofizaci&oacute;n, la pendiente tiende a aumentar. Se advierte tambi&eacute;n que los    tratamientos sin Nitr&oacute;geno se localizan a la izquierda de la figura, justamente    donde en la <a href="#figura3">figura 3</a> la pendiente es menor; en la misma figura los tratamientos    con las concentraciones mayores de N y P se sit&uacute;an donde la pendiente es mayor,    esto es, m&aacute;s alejada de cero. En el caso de los taxones abundantes y raros (<a href="#figura9">Figs.    9</a> y <a href="#figura10">10</a>), el comportamiento fue inverso, es decir, su n&uacute;mero decrece en la medida    en que la pendiente disminuye y hacia donde se aumenta la eutrofizaci&oacute;n. </p>     <p><b>DISCUSION</b></p>     ]]></body>
<body><![CDATA[<p>La    palabra <i>limitaci&oacute;n</i> ha sido usada para explicar el control de la din&aacute;mica    del crecimiento del fitoplancton, la pobreza de la biomasa del plancton y la    escasez<b> </b>de los nutrientes. Pero, al igual que <i>nicho</i>, la palabra    <i>factor</i> <i>limitante</i>&#900; es usada en una variedad de formas con    varios grados de sinonimia con t&eacute;rminos relacionados como <i>factor</i> <i>controlador</i>,    <i>factor</i> <i>regulador</i> y <i>factor</i> <i>denso</i>-<i>dependiente</i>    (Arthur 1987). El mismo autor propone definir <i>factor</i> <i>limitante</i>    como cualquier factor denso-dependiente que sea efectivo para hacer que la poblaci&oacute;n    retorne hacia un estado estable despu&eacute;s que una perturbaci&oacute;n la ha alejado de    &eacute;l, siendo por tanto el <i>factor limitante</i> una sub-serie de los f<i>actores    dependientes de la densidad y</i> los t&eacute;rminos <i>factor regulador </i>y<i>    factor controlador</i> sin&oacute;nimos de <i>factor limitante</i>. </p>     <p>Se    acepta que todos los ambientes no t&oacute;xicos tienen una capacidad limitada de soporte    que se basa generalmente en la noci&oacute;n de que los recursos disponibles son agotados    en el ensamblaje de biomasa a cuotas casi fijas en condiciones ideales, hasta    un m&aacute;ximo de biomasa (Reynolds 2006). Por ello, el hecho de competir y compartir    un factor limitante llegan a ser la misma cosa y si las especies no comparten    el factor limitante, la raz&oacute;n para su coexistencia o la ausencia de ella no    puede ser vista en el &aacute;mbito de los mecanismos de estabilizaci&oacute;n (Arthur 1987).</p>     <p>Los    cambios en la equidad y tendientes a la disminuci&oacute;n en la medida que se incrementaba    el enriquecimiento hasta llegar al tratamiento N<sub>2</sub>P<sub>1</sub>, coinciden    –como se mencion&oacute; en los resultados– con los de la pendiente media de las curvas    de rango-abundancia. La mayor equidad presente en los primeros tratamientos    implica que las pendientes de dichas curvas fueron menores, es decir que las    diferencias en la densidad de los taxones presentes en la comunidad en ese momento    no era contrastante, esto es, que la respuesta de los mismos frente al enriquecimiento    no era apreciable. La posterior disminuci&oacute;n de la equidad indica incrementos    de dominancia para algunos taxones (los muy abundantes, <a href="#figura8">Fig. 8</a>) y disminuci&oacute;n    para otros (los abundantes y raros, <a href="#figura9">Figs. 9</a> y <a href="#figura10">10</a>) con la eutrofizaci&oacute;n.</p>     <p>La    variabilidad no significativa de la riqueza puede explicarse porque las condiciones    del experimento facilitan la presencia constante de especies abundantes y raras    en la muestra lo que impedir&iacute;a que la riqueza presente periodos contrastantes,    aunque levemente decrecientes con el enriquecimiento (<a href="#figura2">Fig. 2</a>). </p>     <p>Lo    preliminar significa que a medida que la tasa de cambio de la curva rango–abundancia    se hace mayor –es decir, se hace m&aacute;s negativa e inclinada por estar m&aacute;s alejada    de cero– se incrementa el n&uacute;mero de taxones muy abundantes (<a href="#figura8">Fig. 8</a>), lo que    corresponde a una disminuci&oacute;n en la equidad (<a href="#figura2">Fig. 2</a>), la riqueza (<a href="#figura3">Fig. 3</a>) y    a un aumento en la eutrofizaci&oacute;n, y disminuyen los taxones raros y abundantes    (<a href="#figura9">Figs. 9</a> y <a href="#figura10">10</a>) y se incrementan la equidad y la riqueza (<a href="#figura2">Figs. 2</a> y <a href="#figura3">3</a>) a medida    que decrece el enriquecimiento. Este proceso se da hasta el tratamiento (N<sub>2</sub>P<sub>0</sub>),    cuando el enriquecimiento, aparentemente excesivo, comienza a perjudicar la    respuesta de la densidad y empieza a operar el principio de tolerancia de Shelford    y el enriquecimiento se torna excesivo, como puede apreciarse en las <a href="#figura4">figuras    4</a>, <a href="#figura5">5</a> y <a href="#figura7">7</a>.</p>     <p>Fundamentados    en lo precedente, en las figuras mencionadas la ausencia de Nitr&oacute;geno, equivalente    en este experimento a su limitaci&oacute;n, ocasiona respuestas que se manifiestan    como cambios coherentes del ensamblaje fitoplanct&oacute;nico frente a la eutrofizaci&oacute;n    artificial –mostrados por la equidad y la riqueza y las pendientes de las curvas    de rango-abundancia– constituy&eacute;ndose en una primera evidencia de que en la presa    del embalse estudiado el fitoplancton est&aacute; limitado por Nitr&oacute;geno, como se determin&oacute;    en el trabajo de Ram&iacute;rez, Vargas &amp; Guti&eacute;rrez (2005) a partir de un n&uacute;mero    de muestreos mucho menor. Adem&aacute;s, desde el punto de vista de los mecanismos    que favorecen la renovaci&oacute;n de nutrientes, principalmente la mezcla profunda,    el sistema no presenta una variabilidad sustancial en el tiempo, lo cual ya    fue demostrado por el trabajo de C&oacute;rdoba (in&eacute;d.) referido a la poca variabilidad    de la estratificaci&oacute;n en la presa de este cuerpo de agua. </p>     <p>Otra de las caracter&iacute;sticas importantes    a considerar en este punto es que la adici&oacute;n de Nitr&oacute;geno y F&oacute;sforo tiene un    efecto mayor sobre los diferentes ensambles organ&iacute;smicos cuando son suministrados    conjuntamente que cuando se adicionan por separado, al igual que sucedi&oacute; en    el trabajo realizado por Gonz&aacute;lez &amp; Ortaz (1998). Lo anterior es un indicio    claro de que la bolsa patr&oacute;n que inclu&iacute;a el agua de la represa sin ninguna adici&oacute;n    de nutriente (N<sub>0</sub>P<sub>0</sub>) conten&iacute;a como limitante un factor    diferente al F&oacute;sforo y que en este primer tratamiento el fitoplancton no respondi&oacute;    de la forma esperada porque no hab&iacute;a Nitr&oacute;geno, lo que conforma una nueva demostraci&oacute;n    de que efectivamente en la superficie del agua de la zona de trabajo, el ensamblaje    de fitoplancton est&aacute; limitado por Nitr&oacute;geno. Estas respuestas concuerdan plenamente    con lo expresado en la ley del m&iacute;nimo (Odum 1973) ya que, al no adicionar Nitr&oacute;geno,    la respuesta del ensamblaje fitoplanct&oacute;nico fue m&iacute;nima en relaci&oacute;n a la presencia    de &eacute;ste o a la combinaci&oacute;n de ambos. En el embalse La Mariposa en Venezuela,    Gonz&aacute;lez &amp; Ortaz (1998) encontraron, al igual que en esta investigaci&oacute;n,    que la biomasa del fitoplancton respondi&oacute; en mayor escala a los tratamientos    con Nitr&oacute;geno que a los tratamientos con F&oacute;sforo.</p>     <p>El    comportamiento de las Chlorococcales, y en menor grado de las Chroococcales    presentes en el microcosmos al agregar una m&iacute;nima cantidad de Nitr&oacute;geno, fue    consistente en comparaci&oacute;n a la agregaci&oacute;n de F&oacute;sforo (<a href="#figura4">Figs. 4</a> y <a href="#figura5">5</a>). Igual conducta    present&oacute; el ensamblaje fitoplanct&oacute;nico, en especial los taxones muy abundantes    del mismo, que predominaron a medida que se incrementaba el enriquecimiento,    mientras disminu&iacute;an los abundantes y raros (<a href="#figura8">Figs. 8</a> a <a href="#figura10">10</a>). Vale pena anotar que los taxones muy abundantes    siempre fueron inferiores en n&uacute;mero a los abundantes. Esto muestra la sensibilidad    de las diferentes porciones de la curva rango-abundancia a los cambios ambientales    (incremento de la eutrofizaci&oacute;n en este caso). Lo expresado coindice con lo    expuesto por Magurran (2008) acerca de la necesidad de proveer informaci&oacute;n detallada    de todas las especies en un ensamblaje, pues la proporci&oacute;n de especies cambiar&aacute;    de acuerdo con la intensidad del muestreo y la escala de la investigaci&oacute;n en    concordancia con las variaciones de equidad del ensamblaje (como efectivamente    ocurri&oacute; en la presente investigaci&oacute;n).      <p>Las    Chlorococales, al igual que las Chroococcales son reconocidas indicadoras de    eutrofizaci&oacute;n (Rojo &amp; &Aacute;lvarez-Cobelas 1991, &Aacute;lvarez-Cobelas &amp; Jacobsen    1992, Reynolds 1984, 1997, 2006, entre otros). Por ello, Reynolds (1997, 2006),    Reynolds <i>et al.</i> (2002) y Kruk <i>et al.</i> (2002) colocan a las primeras    en los grupos funcionales <b>J y X1, </b>y en los <b>K</b> y <b>M</b> a las    Chroococcales; todas estas asociaciones son correspondientes a lagos eutrofizados.    Sin embargo llama la atenci&oacute;n la ausencia de cianobacterias del grupo <b>H </b>en    los limnocorrales, pues son caracter&iacute;sticas de ambientes limitados por Nitr&oacute;geno    (Reynolds, 1997, 2006). Seg&uacute;n Reynolds (1997, 2006), la habilidad para fijar    Nitr&oacute;geno provee una ventaja real &uacute;nicamente en aquellos sistemas donde el Nitr&oacute;geno    inorg&aacute;nico disuelto es ‘verdaderamente limitante' y donde las fuentes de energ&iacute;a,    F&oacute;sforo, Hierro, Molibdeno y Vanadio son simult&aacute;neamente suficientes para soportar    la fijaci&oacute;n exitosa de N<sub>2</sub>; de tal manera que no es s&oacute;lo la baja disponibilidad    de Nitr&oacute;geno inorg&aacute;nico disuelto lo que garantiza la presencia de cianobacterias    fijadoras. Estas condiciones son dif&iacute;ciles de garantizar en el interior de las    bolsas. Adem&aacute;s, seg&uacute;n (Blomqvist <i>et al</i>. 1994) las cianobacterias no fijadoras    de N proliferan cuando la fuente de nitr&oacute;geno est&aacute; en forma de cloruro de amonio,    la cual no fue empleada en este trabajo. </p>     <p>Generalmente las Cyanobacteria son    mejores competidoras por el Nitr&oacute;geno, pero pobres competidoras por el F&oacute;sforo    cuando se les compara con otras especies del fitoplancton, predominando en situaciones    en las que la proporci&oacute;n N: P es menor que <    ]]></body>
<body><![CDATA[<p> ProductID="9. A" w:st="on">9.    A pesar de ello, la proporci&oacute;n N: P por s&iacute; sola no es suficiente para explicar    la ausencia o la presencia de las diversas especies en los lagos (Reynolds 1997,    2006). Pa ra Sommer (1990) las tasas de suministro de N y de P y la capacidad    de incorporaci&oacute;n de las algas m&aacute;s que la concentraci&oacute;n de estos elementos, son    las limitantes de su crecimiento. N&oacute;tese que en los tratamientos N<sub>0</sub>P<sub>1</sub>,    N<sub>0</sub>P<sub>2</sub>, N<sub>0</sub>P<sub>3</sub>, N<sub>1</sub>P<sub>3</sub>    con proporciones N: P de 0:10, 0:50, 0:100 y en los que claramente el Nitr&oacute;geno    es limitante, las Chroococcales no presentaron la mayor densidad. Adem&aacute;s, a    medida que se incorporaba m&aacute;s N y/o P, su densidad decay&oacute; ostensiblemente, excepto    en los tratamientos N<sub>1</sub>P<sub>0</sub> (500:0) y N<sub>2</sub>P<sub>0</sub>    (1000:0); sin embargo, en estos las proporciones N:P son muy superiores a las    reportadas como limitantes para las Cyanobacteria, luego el incremento de densidad    en estos tratamientos no constituye una prueba clara de limitaci&oacute;n por Nitr&oacute;geno.</p>     <p>La forma en que una especie compite    con otra por los nutrientes disponibles depende de factores como el consumo    de nutrientes y la velocidad de asimilaci&oacute;n; esta es la base del concepto de    "competici&oacute;n por el nutriente" en las poblaciones de algas. Las algas con tama&ntilde;os    menores tienen mayores tasas de asimilaci&oacute;n de nutrientes que las de tama&ntilde;o    mas grande, por esto Tilman, Kilham &amp; Kilham (1982) y Reynolds (1997) han    sugerido incluso que no se deber&iacute;a hablar de lagos "limitados en F&oacute;sforo" o    "limitados en Nitr&oacute;geno". M&aacute;s bien deber&iacute;a reconocerse que las "algas individualmente    –no los lagos– est&aacute;n limitadas por un nutriente en particular" y que, como expresa    Reynolds (2006) es la disponibilidad de nutrientes, no la raz&oacute;n entre uno y    otro (N/P, por ejemplo) lo que es crucial, pues las razones son consecuencia    de la incorporaci&oacute;n, no su causa.</p>     <p>La colonizaci&oacute;n de las Chlorococcales    y Chroococcales ocurre a una mayor velocidad debido al menor tama&ntilde;o de sus miembros    y a su amplio espectro de adaptabilidad a las condiciones extremas del clima,    siendo muchas de ellas estrategas tipo r (Sandgren 1988, Paerl 1988). Ambos    &oacute;rdenes son uno de los grupos que mejor responden a los est&iacute;mulos positivos    de las condiciones ambientales, por lo que –al igual que otros fitopl&aacute;ncteres–    cuando las condiciones del medio les son favorables una de sus estrategias es    la de aprovechar los per&iacute;odos cortos de luz y de disponibilidad de nutrientes    para tener per&iacute;odos igualmente cortos de crecimiento, lo que les posibilita    competir exitosamente en un momento determinado (estrategia r) ; sin embargo,    esto les trae una desventaja: en los per&iacute;odos de oscuridad son poco competentes    ante otros grupos algales como las diatomeas (Reynolds 1997).</p>     <p>No    empero, las diatomeas no fueron el grupo dominante en esta investigaci&oacute;n debido    quiz&aacute;s a que el aislamiento al que est&aacute;n sometidos los microcosmos respecto    al lago en s&iacute; mismo ‘altera' el ambiente y suprime factores importantes como    la mezcla (los microcosmos son est&aacute;ticos en su interior), el clima &oacute;ptico (dependiente    del &iacute;ndice de refracci&oacute;n del pl&aacute;stico usado), la temperatura, el pH, y la posibilidad    de migraci&oacute;n de los organismos para evitar la competencia y la depredaci&oacute;n,    entre otros. La "ausencia" de estas condiciones explicar&iacute;a por qu&eacute; se encontraron    m&aacute;s diatomeas en el agua del embalse (N<sub>0</sub>P<sub>0</sub>) que en los    tratamientos enriquecidos. Arias &amp; Ram&iacute;rez (2007) hallaron una alta abundancia    de diatomeas en el fondo del embalse. Como se ha establecido (Reynolds 1997,    2006, Sommer 1988) las diatomeas, debido al peso de sus fr&uacute;stulos, requieren    de un subisidio exosom&aacute;tico para estar presentes en las zonas superiores de    un cuerpo de agua: este subsidio es la mezcla, la cual no es un factor importante    en el interior de los microcosmos. Por ello, en el agua del embalse, donde si    hay mezcla que las resuspenda, se halla un in&oacute;culo de estos organismos, que    no prosper&oacute; como se esperaba con el enriquecimiento, permaneciendo s&oacute;lo aquellos    g&eacute;neros "adaptados" a condiciones sub&oacute;ptimas. Seg&uacute;n Margalef (1983), la alta    proporci&oacute;n N:P ayudar&iacute;a a explicar la dominancia de las diatomeas, pero en los    cuatro primeros tratamientos en los que la proporci&oacute;n de P es muy superior a    la de N, no se present&oacute; dicho preeminencia. </p>     <p>Diferentes autores afirman que la biomasa del fitoplancton en un cuerpo de    agua es proporcional a su carga de nutrientes, es decir que la masa fitoplanct&oacute;nica    aumentar&aacute; a medida que la disponibilidad de nutrientes lo haga y empiece a aumentar    la eutrofizaci&oacute;n. Hasta este punto regir&aacute; la Ley de von Liebig hasta un punto    entre N<sub>2</sub>P<sub>0</sub> y N<sub>1</sub>P<sub>3 </sub>cuando la densidad    comienza a decaer por el enriquecimiento excesivo; a partir de all&iacute; se manifiesta    "La Ley de la Tolerancia de Shelford" (Odum 1973).</p>     <p>Puede    entonces decirse que la identidad del factor con capacidad limitante es revelada    por la magnitud de la respuesta a su aumento. Por ello, Gibson (1971) dedujo    que una substancia no tiene capacidad limitante si un incremento de la misma    no aumenta la biomasa que puede ser soportada. Como se ha insistido, este comportamiento    fue evidente para las Chlorococcales y para el fitoplancton total mas no para    las Chroococcales y las diatomeas.</p>     <p>En    consecuencia, la existencia y prosperidad de un organismo dependen del car&aacute;cter    completo de un conjunto de condiciones (nutrientes, luz, temperatura, pH, alcalinidad,    entre muchos otros) que las bolsas no proveen. La ausencia o el desmedro de    un organismo podr&aacute; deberse a la deficiencia o al exceso cualitativo o cuantitativo    con respecto a uno cualquiera de diversos factores que se acercar&aacute;n talvez a    los l&iacute;mites de tolerancia del organismo en cuesti&oacute;n. Por eso, algunos organismos    frente a concentraciones altas de un nutriente desaparecen y surgen otros m&aacute;s    aptos para las nuevas condiciones, lo que demuestra que otros factores, adem&aacute;s    de los nutrientes, pueden controlar, de forma importante, la densidad de algas    de un lago (Sandgren 1988, Reynolds 1984, 1997, 2006) y los diferentes tipos    de taxones presentes en el ensamblaje. </p>     <p>Esto    se evidencia en lo que Ryden (1992) denomin&oacute; "meseta" de la curva de crecimiento    del fitoplancton que representa la repuesta de las algas a los nutrientes, la    cual generalmente aumenta de manera lineal con el aumento de las concentraciones    de nutrientes hasta un punto asint&oacute;tico, a partir del cual los valores del fitoplancton    son relativamente constantes, no observ&aacute;ndose un aumento en el crecimiento ni    en la biomasa de las algas, independientemente del incremento de los nutrientes.    Todo indica que este punto en esta investigaci&oacute;n es la concentraci&oacute;n N<sub>2</sub>P<sub>0</sub>.  </p>     <p>Se    espera que a tasas estables pero bajas de suplemento exista alguna proporcionalidad    entre las tasas de crecimiento y la concentraci&oacute;n del recurso. Sin embargo,    cuando la tasa de oferta de nutrientes supera a la implementaci&oacute;n de los mismos,    y se incrementa el almacenamiento interno, la tasa de incorporaci&oacute;n de un nutriente    en particular decae, aunque haya una alta concentraci&oacute;n externa. Puede entonces    decirse que entre mayor sea la cuota celular de un nutriente en particular,    menor ser&aacute; la tasa efectiva de incorporaci&oacute;n del mismo quedando as&iacute; disponible.    Esta conclusi&oacute;n resalta, que las diferencias interespec&iacute;ficas de las algas para    incorporar un recurso de baja disponibilidad influencian la estructura de los    ensamblajes y menguan la competencia por dicho nutriente. De esta manera, la    c&eacute;lula puede acumular un nutriente escaso (por ejemplo el F&oacute;sforo) siempre y    cuando la absorci&oacute;n de otro (Nitr&oacute;geno, por ejemplo) est&eacute; controlando (limitando)    la tasa de implementaci&oacute;n de ambos en la estructura de nuevo material celular.    Pero si se incrementa el suplemento de Nitr&oacute;geno sin alterar la disponibilidad    de F&oacute;sforo, muy r&aacute;pidamente el Nitr&oacute;geno se convertir&aacute; en limitante, siempre    y cuando la cuota celular m&iacute;nima de F&oacute;sforo haya disminuido. De esta forma,    el uso de las razones de nutrientes para referir la identidad del nutriente    limitante queda cuestionado, pues ignora la importancia de la cuota celular    (Reynolds 2006). </p>     <p>Existen    tambi&eacute;n otros elementos limitantes diferentes al N y P, por ejemplo el Carbono,    pero para que esto suceda deben existir una serie de caracter&iacute;sticas muy especiales,    las cuales se dan cuando el F&oacute;sforo y el Nitr&oacute;geno se encuentran en concentraciones    altas y muy altas, la disponibilidad de luz es menor, la temperatura es alta    y el transporte de CO<sub>2</sub> desde la atmosfera hasta la columna de agua    es bajo. Aunque esto puede darse en estanques con elevadas cantidades de abonos    y aguas residuales, normalmente no ocurre en lagos y embalses bajo condiciones    naturales (Ryden 1992).</p>     ]]></body>
<body><![CDATA[<p>Como    fue establecido en los resultados, la fertilizaci&oacute;n ocasion&oacute; que grupos como    Cryptophyta, Dinophyta, Desmidiales y Zygnematales (que no son eufitoplanct&oacute;nicas)    presentaran muy poca densidad y que las Euglenophyta nunca estuvieran presentes.    A continuaci&oacute;n se discuten las posibles causas.</p>     <p>Para    Klaveness (1988) las Cryptophyta raramente desarrollan <i>blooms</i>. No obstante,    Ilmavirta (1980, 1983) reporta que los organismos de este grupo incrementan    su dominancia con el aumento del color pero no con el incremento de la concentraci&oacute;n    de nutrientes, lo cual era el objetivo de este trabajo. </p>     <p>Por su parte, los dinoflagelados prefieren aguas duras con altas concentraciones    de Calcio (Pollingher 1988), la cual es una condici&oacute;n que en el interior de    las bolsas experimentales no ocurre debido a que no se suministr&oacute; ninguna fuente    de Calcio al agua. Adem&aacute;s, el agua del embalse La Fe se caracteriza por sus    bajos valores de alcalinidad, conductividad y dureza. El mismo Pollingher (1988)    informa que los dinoflagelados prefieren aguas bien oxigenadas y se caracterizan    por evitar las eutr&oacute;ficas y an&oacute;xicas. Aunque en el embalse, se presentan normalmente    <i>blooms</i> de <i>Ceratium</i> sp., posiblemente los in&oacute;culos suministrados    en el agua del embalse sin enriquecer, no encuentran en los limnocorrales usados    las condiciones ideales exigidas por este grupo para aumentar.</p>     <p>Las    desmidiaceas generalmente habitan aguas alcalinas y pueden ser transportadas    desde el bentos o el metafiton hacia el agua abierta para desarrollarse como    eufitoplancton, lo que sugiere que estas poblaciones se derivan a partir de    los sobrevivientes de poblaciones que crecen en nichos metaf&iacute;ticos y b&eacute;nticos    (Happeywood 1988). En las bolsas usadas para este experimento la presencia de    estos in&oacute;culos est&aacute; ampliamente limitada y los presentes inicialmente en el    agua del lago sin enriquecer seguramente sucumben o disminuyen ostensiblemente    su densidad ante los cambios de pH que ocurren en el interior de las bolsas;    por ello, s&oacute;lo fueron hallados en el d&eacute;cimo muestreo y &uacute;nicamente en dos de    las bolsas incubadas. </p>     <p>Generalmente,    las Euglenophyta son consideradas buenas indicadoras de la concentraci&oacute;n de    materia org&aacute;nica y, por ende, de las diferentes formas del carbono org&aacute;nico    presente en un cuerpo de agua (Slade&#269;ek &amp; Perman 1978, Wetzel 2000,    Reynolds et al. 2002). Sin embargo, recientemente, Conforti et al. (2005) en    muestreos realizados mensualmente en el parque Nacional Las Tablas de Daimiel,    un humedal hipereutr&oacute;fico en la llanura manchega de Espa&ntilde;a. Los autores, basados    en los resultados hallados, consideran que si las Euglenophyta tienen alg&uacute;n    valor indicador lo tienen fuera de los sistemas hipereutr&oacute;ficos, pues en los    mismos la contaminaci&oacute;n ya no puede seguir increment&aacute;ndose y ellas fluct&uacute;an    aleatoriamente y no en relaci&oacute;n con las concentraciones de C org&aacute;nico total,    disuelto y particulado ni con ninguno de los nutrientes normalmente registrados    en los estudios limnol&oacute;gicos. En el interior de las bolsas, posiblemente la    materia org&aacute;nica presente estar&iacute;a restringida a los procesos de reciclaje del    material por la muerte de las algas en el interior de las mismas. Quiz&aacute; en la    competencia desarrollada con el bacterioplancton presente, las Euglenophyta    no fueron favorecidas y por eso no se hallaron en ninguno de los muestreos.</p>     <p><b>Conclusiones</b></p>     <p>El    enriquecimiento artificial con Nitr&oacute;geno y F&oacute;sforo en diferentes concentraciones    produjo un incremento diferencial de diferentes ensambles fitoplanct&oacute;nicos,    siendo m&aacute;s evidente en las Chlorococcales, seguidas de las Chroococcales, y    menos en las diatomeas. Conforme a lo postulado en la hip&oacute;tesis, durante el    periodo estudiado el nutriente limitante fue el Nitr&oacute;geno. En los tratamientos    sin Nitr&oacute;geno, la equidad del ensamblaje fitoplanct&oacute;nico presente fue mayor,    al igual que su riqueza y esta condici&oacute;n disminuy&oacute; a medida que se increment&oacute;    el enriquecimiento hasta un punto entre N<sub>2</sub>P<sub>0</sub> y N<sub>1</sub>P<sub>3</sub>.  </p>     <p>Con base en los resultados obtenidos, puede preverse que si en el embalse La    Fe se iniciara un proceso de eutrofizaci&oacute;n en la fecha en la que comenz&oacute; esta    investigaci&oacute;n, las consecuencias ser&iacute;an: 1) el aumento de la biomasa y la densidad    algal, 2) la desaparici&oacute;n de las Euglenophyta, y la disminuci&oacute;n ostensible de    las Cryptophyta, las Dinophyta, las Desmidiales y las Zygnematales; 3) una dominancia    alternada entre Chlorophyta, Cyanobacteria y Bacillariophyta; 4) la aparici&oacute;n    espor&aacute;dica de cianobacterias filamentosas heterocitadas; 5) la disminuci&oacute;n de    las diatomeas, especialmente a altas concentraciones de Nitr&oacute;geno, pero incrementos    de las mismas en los periodos de profundizaci&oacute;n de la capa mezclada y 6) con    el aumento en la eutrofizaci&oacute;n se incrementar&aacute; tambi&eacute;n el n&uacute;mero de taxones    muy abundantes y disminuir&aacute;n los abundantes y raros. Adem&aacute;s, debido a que el    embalse tiene un tiempo de residencia relativamente alto (20 d&iacute;as aproximadamente)    la carga de materia org&aacute;nica (biomasa) aut&oacute;ctona alcanzar&aacute; a precipitarse y    su descomposici&oacute;n en el fondo acrecentar&aacute; la anoxia a esa profundidad; por tanto,    el costo de la potabilizaci&oacute;n del agua del embalse extra&iacute;da de esa profundidad    ser&aacute; muy oneroso. No sobra recordar que la anoxia incrementa la posibilidad    de limitaci&oacute;n por Nitr&oacute;geno.</p>     <p><b>AGRADECIMIENTOS</b></p>     <p>Los autores agradecen a la Universidad de Antioquia, a Darlin Tob&oacute;n de las    Empresas P&uacute;blicas de Medell&iacute;n por las facilidades para el ingreso y el uso de    las instalaciones; y a los motoristas de la represa quienes siempre estuvieron    y est&aacute;n prestos a colaborar desinteresadamente.</p>     ]]></body>
<body><![CDATA[<p><b>LITERATURA    CITADA</b></p>     <!-- ref --><p>1. &Aacute;lvarez-Cobelas, M. &amp; B.A. Jacobsen. 1992. Hypertrophic phytoplankton:    an overview. Freshwater Forum 2: 184 – 199.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000094&pid=S0366-5232201200020001200001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>2. Arias, J.C. &amp; J.J. Ram&iacute;rez. 2007. Caracterizaci&oacute;n preliminar de los    sedimentos en un embalse tropical: represa La Fe (el Retiro, Antioquia, Colombia).    Limnetica 28: 65-78.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000096&pid=S0366-5232201200020001200002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>3. Arthur, W. 1987. <i>The niche in competition and evolution</i>. John Wiley    &amp; Sons, Nueva York.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000098&pid=S0366-5232201200020001200003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>4. Blomqvist, D.O., A. Pettersson &amp; F. Hyenstrand. 1994. Ammonium-nitrogen:    a key regulatory factor causing dominance of non-nitrogen-fixing Cyanobacteria    in aquatic systems. Archiv für Hydrobiologie 132: 141-164.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000100&pid=S0366-5232201200020001200004&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>5. Cao, Y., D. Dudley Williams &amp; N.E. Williams. 1998. How important are    rare species in aquatic community ecology and bioassessment? Limnology and Oceanography    43: 1403-1409.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000102&pid=S0366-5232201200020001200005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> </p>     <!-- ref --><p>6. Gonz&aacute;lez, E. &amp; M. Ortaz. 1998. Efectos del enriquecimiento con N y P    sobre la comunidad del fitoplancton en microcosmos de un embalse tropical (La    Mariposa, Venezuela). Revista de Biolog&iacute;a Tropical 46: 27-34.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000104&pid=S0366-5232201200020001200006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>7. Henry, R. &amp; J.G. Tundisi. 1983. Responses of the phytoplankton community    of a tropical reservoir (Sao Paulo, Brazil) to the enrichment with nitrates,    phosphate and EDTA. Internationale Revue der Gesantem Hydrobiologie 68: 853-862.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000106&pid=S0366-5232201200020001200007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>8. Henry, R. &amp; J.G. Tundisi. 1982. Efeitos de enriquecimento artifical    por nitrato e fosfato no crescimento da comunidade fitoplanct&oacute;nica da represa    de Lobo (Broa, Brotas-Itirapina, SP.). Ci&ecirc;ncia e Cultura 4: 518-524.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000108&pid=S0366-5232201200020001200008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>9. Henry, R. 1990. ¿Am&ocirc;nia ou fosfato como agente estimulador do crescimento    do fitopl&acirc;ncton na represa de Jurumirim (Rio Paranapanema, SP). Revista Brasileira    de Biologia 50: 883-892.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000110&pid=S0366-5232201200020001200009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>10. Henry, R. &amp; C.A. Sim&atilde;o. 1988. Aspectos sazonais da limita&ccedil;&atilde;o potencial    por N, P e Fe no fitopl&acirc;ncton da represa de Barra Bonita (Rio Tiet&ecirc;, SP). Revista    Brasileira de Biolog&iacute;a 48: 1-14.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000112&pid=S0366-5232201200020001200010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>11. Henry, R., M.S.R. Iba&ntilde;ez, J.G. Tundisi &amp; M.C. Calijuri. 1987. Addition    of phosphate and ammonia and its effects on the surface phypoplankton in two    lakes of Rio Doce Valley Park en: S. Saijo (ed.). <i>Limnological Studies in    Rio Doce Valley lakes and pantanal wetland, Brazil (2and report).</i> Water    Research Institute, Nagoya University.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000114&pid=S0366-5232201200020001200011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>12. Hernani, A. &amp;  J.J. Ram&iacute;rez 2002. Aspectos morfom&eacute;tricos y te&oacute;ricos    de un embalse tropical de alta monta&ntilde;a: represa La Fe, El Retiro, Colombia.    Revista de la Academia de Ciencias Exactas F&iacute;sicas y Naturales 26: 511-518.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000116&pid=S0366-5232201200020001200012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>13. Ib&aacute;&ntilde;ez, M.S.R. 1988. Response to artificial enrichment with ammonia and    phosphate of phytoplankton from lake Parano&aacute; (Brasilia, DF). Revista Brasileira    de Biolog&iacute;a 48: 453-457.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000118&pid=S0366-5232201200020001200013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>14. Ilmavirta, V. 1980. Phytoplankton in 35 Finnish brown-water lakes of different    eutrophic status. Developments in Hydrobiology 3: 121-130. Cap. 3. p&aacute;g. 127    en: C. D. Sandgren (ed.). 1988. <i>Growth and reproductive strategies of freshwater    phytoplankton.</i> Cambridge University Press, Cambridge.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000120&pid=S0366-5232201200020001200014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> </p>     <!-- ref --><p>15. Ilmavirta, V. 1983. The role of flagellated phytoplankton in chains of    small brown-water lakes in southern finland. Annals Botanica Fennici 20: 187-195.    Cap. 3. p&aacute;g. 127 en: C. D. Sandgren (ed.). 1988. <i>Growth and reproductive    strategies of freshwater phytoplankton.</i> Cambridge University Press, Cambridge.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000122&pid=S0366-5232201200020001200015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref -->  </p>     <!-- ref --><p>16. Klaveness, D. 1988. Ecology of Cryptomonadida: a first review. Cap. 3.    p&aacute;gs. 105-133 en: C. D. Sandgren (ed.). <i>Growth and reproductive strategies    of freshwater phytoplankton.</i> Cambridge University Press, Cambridge.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000124&pid=S0366-5232201200020001200016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>17. Kruk, C., N. Mazzeo, G. Lacerot &amp; C.S. Reynolds. 2002.<b> </b>Classification    schemes for phytoplankton: a local validation of a functional approach to the    analysis of species temporal replacement. Journal of Plankton Research 24: 901-912.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000126&pid=S0366-5232201200020001200017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>18. Lewis Jr, W. 2000. Basis for the protection and management of    tropical lakes. Lakes &amp; Reservoir Research and Management 5: 35-48.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000128&pid=S0366-5232201200020001200018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>19. Lewis Jr, W. 2002. Causes for the high frequency of Nitrogen    limitation in tropical lakes. Verhandlungen Internationale Vereinigung für Theoretische    und Angewandte Limnologie 28: 210-213.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000130&pid=S0366-5232201200020001200019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>20. Magurran, A.E. 2007. Species abundance distribution over time. Ecology    Letters 10: 347-354.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000132&pid=S0366-5232201200020001200020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>21. Magurran, A.E. 2008. <i>Measuring ecological diversity</i>. Blackwell Publishing,    Oxford.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000134&pid=S0366-5232201200020001200021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>22. Odum, E.P. 1973, <i>Ecolog&iacute;a.</i> 3a edici&oacute;n. Ed. Interamericana,    M&eacute;xico.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000136&pid=S0366-5232201200020001200022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> </p>     <!-- ref --><p>23. Paerl, H.W. 1988. Growth and reproductive strategies of freshwater blue    green algae (Cyanobacteria). Cap. 7. p&aacute;gs. 261-315 en: C. D. Sandgren (ed.).    <i>Growth and reproductive strategies of freshwater phytoplankton.</i> Cambridge    University Press, Cambridge.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000138&pid=S0366-5232201200020001200023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> </p>     <!-- ref --><p>24. Pollinher, U. 1988. Freshwater armored dinoflagellates: growth, reproduction    strategies, and population dynamics. Cap. 4. p&aacute;gs. 134-174 en: C. D. Sandgren    (ed.). <i>Growth and reproductive strategies of freshwater phytoplankton.</i>    Cambridge University Press, Cambridge.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000140&pid=S0366-5232201200020001200024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> </p>     <!-- ref --><p>25. Ram&iacute;rez, J.J., F.L. Guti&eacute;rrez &amp; A. Vargas. 2005. Respuesta de la comunidad    fitoplanct&oacute;nica a experimentos de eutrofizaci&oacute;n artificial realizados en la    represa La Fe, El Retiro, Antioquia, Colombia. Caldasia 27:103-115.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000142&pid=S0366-5232201200020001200025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>26. Reynolds, C.S. 1984. <i>The Ecology of freshwater phytoplankton.</i> Cambridge    University, Cambridge.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000144&pid=S0366-5232201200020001200026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>27. Reynolds, C.S. 1997. <i>Vegetation processes in the pelagic: a model for    ecosystem theory.</i> Ecology Institute. Oldendorf/Luhe, 371 pp.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000146&pid=S0366-5232201200020001200027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>28. Reynolds, C.S. 2006. <i>The Ecology of phytoplankton.</i> Cambridge University,    Cambridge.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000148&pid=S0366-5232201200020001200028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>29. Reynolds, C.S., V. Huszar, C. Kruk, L. Naselli-Flores &amp; D. Sergio Melo.    2002.<b> </b>Towards a functional classification of the freshwater phytoplankton.    Journal of Plankton Research 24: 417-428.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000150&pid=S0366-5232201200020001200029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>30. Rojo, C. &amp; M. &Aacute;lvarez-Cobelas. 1991. Phytoplankton assemblages of a    hypertrophic, gravel-pit lake. Verhandlungen Internationale Vereinigung für    Theoretische und Angewante Limnologie 24: 1550 – 1555.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000152&pid=S0366-5232201200020001200030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>31. Rojo, C. &amp; M. &Aacute;lvarez-Cobelas. 1995. Ecology of phytoplankton in a    hypertrophic, gravel-pit lake. IV Chlorophyceae, Chlorococcales. Algological    Studies 77: 7-35.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000154&pid=S0366-5232201200020001200031&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>32. Sandgren, C.D. (ed.). 1988. <i>Growth and reproductive strategies of freshwater    phytoplankton.</i> Cambridge University Press, Cambridge.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000156&pid=S0366-5232201200020001200032&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> </p>     <!-- ref --><p>33. Sierra, O. &amp; J.J. Ram&iacute;rez. 2000. Variaci&oacute;n espacio-temporal de biopel&iacute;culas    en la represa La Fe, El Retiro, Antioquia (Colombia). Actualidades Biol&oacute;gicas    22: 153-168.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000158&pid=S0366-5232201200020001200033&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>34. Sommer, U. 1990. Phytoplankton succession in microcosm experiment under    simultaneous grazing presence and resource limitation. Limnology and Oceanography    33: 1037-1054.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000160&pid=S0366-5232201200020001200034&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>35. Tilman, D., S.S. Kilham &amp; P. Kilham. 1982. Phytoplankton community    ecology: the role of limiting nutrients. Annual Review of Ecology and Systematics    13: 349-372.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000162&pid=S0366-5232201200020001200035&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --> </p>     <!-- ref --><p>36. Vargas, A. &amp; J.J. Ram&iacute;rez. 2002. Variaci&oacute;n espacio-temporal de las    tasas de sedimentaci&oacute;n del material sest&oacute;nico en un embalse tropical de alta    monta&ntilde;a: represa La Fe, El Retiro, Antioquia, Colombia. Actualidades Biol&oacute;gicas    24: 73-80.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000164&pid=S0366-5232201200020001200036&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>37. Vargas, A. &amp; J.J. Ram&iacute;rez,. 2002. Variaci&oacute;n espacio - temporal de las    tasas de sedimentaci&oacute;n del material sest&oacute;nico en un embalse tropical de alta    monta&ntilde;a: Represa La Fe, El Retiro, Antioquia, Colombia. Actual. Biol. 77: 163-170    .    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000166&pid=S0366-5232201200020001200037&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>38. Vincent, W.F., W.A. Wurtsbaugh, C.L. Vincent &amp; P.J. Richerson. 1984.    Seasonal dynamic of nutrient limitation in a tropical high-latitude lake (Lake    Titicaca, Per&uacute;-Bolivia): application of physiological bioassays. Limnology and    Oceanography 29: 540-552.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000168&pid=S0366-5232201200020001200038&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p>     <!-- ref --><p>39. Wurtsbaugh W.A., W.F. Vincent, C.L. Vincent, H.J. Carney, P.J. Richerson,    X. Lazzaro &amp; R. Alfaro-Tapia. 1991. Nutrientes y su limitaci&oacute;n del crecimiento    fitoplanct&oacute;nico. Cap. 7. p&aacute;gs. 161-175 en: C. Dejoux. &amp; A. Iltis. 1991 (eds.).<i>    El Lago Titicaca. S&iacute;ntesis del conocimiento limnol&oacute;gico actual</i>. Orstom e    Hisbol, La Paz.    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=000170&pid=S0366-5232201200020001200039&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --></p> </font>      ]]></body><back>
<ref-list>
<ref id="B1">
<label>1</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Álvarez-Cobelas]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<source><![CDATA[Hypertrophic phytoplankton: an overview]]></source>
<year>1992</year>
<page-range>184 - 199</page-range><publisher-loc><![CDATA[2 ]]></publisher-loc>
<publisher-name><![CDATA[Freshwater Forum]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B2">
<label>2</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Arias]]></surname>
<given-names><![CDATA[J.C]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Caracterización preliminar de los sedimentos en un embalse tropical: represa La Fe (el Retiro, Antioquia, Colombia)]]></article-title>
<source><![CDATA[Limnetica]]></source>
<year>2007</year>
<volume>28</volume>
<page-range>65-78</page-range></nlm-citation>
</ref>
<ref id="B3">
<label>3</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Arthur]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
</person-group>
<source><![CDATA[The niche in competition and evolution]]></source>
<year>1987</year>
<publisher-loc><![CDATA[Nueva York ]]></publisher-loc>
<publisher-name><![CDATA[John Wiley & Sons]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B4">
<label>4</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Blomqvist]]></surname>
<given-names><![CDATA[D.O]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ammonium-nitrogen: a key regulatory factor causing dominance of non-nitrogen-fixing Cyanobacteria in aquatic systems]]></article-title>
<source><![CDATA[Archiv für Hydrobiologie]]></source>
<year>1994</year>
<volume>132</volume>
<numero>^s141-164</numero>
<issue>^s141-164</issue>
<supplement>141-164</supplement>
</nlm-citation>
</ref>
<ref id="B5">
<label>5</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cao]]></surname>
<given-names><![CDATA[Y]]></given-names>
</name>
</person-group>
<source><![CDATA[How important are rare species in aquatic community ecology and bioassessment]]></source>
<year>1998</year>
<volume>43</volume>
<page-range>1403-1409</page-range><publisher-name><![CDATA[Limnology and Oceanography]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B6">
<label>6</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[González]]></surname>
<given-names><![CDATA[E]]></given-names>
</name>
<name>
<surname><![CDATA[Ortaz]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Efectos del enriquecimiento con N y P sobre la comunidad del fitoplancton en microcosmos de un embalse tropical (La Mariposa, Venezuela)]]></article-title>
<source><![CDATA[Revista de Biología Tropical]]></source>
<year>1998</year>
<volume>46</volume>
<page-range>27-34</page-range></nlm-citation>
</ref>
<ref id="B7">
<label>7</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Henry]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Tundisi]]></surname>
<given-names><![CDATA[J.G]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Responses of the phytoplankton community of a tropical reservoir (Sao Paulo, Brazil) to the enrichment with nitrates, phosphate and EDTA]]></article-title>
<source><![CDATA[Internationale Revue der Gesantem Hydrobiologie]]></source>
<year>1983</year>
<volume>68</volume>
<page-range>853-862</page-range></nlm-citation>
</ref>
<ref id="B8">
<label>8</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Henry]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Tundisi]]></surname>
<given-names><![CDATA[J.G]]></given-names>
</name>
</person-group>
<article-title xml:lang="pt"><![CDATA[Efeitos de enriquecimento artifical por nitrato e fosfato no crescimento da comunidade fitoplanctónica da represa de Lobo (Broa, Brotas-Itirapina, SP.)]]></article-title>
<source><![CDATA[Ciência e Cultura]]></source>
<year>1982</year>
<volume>4</volume>
<page-range>518-524</page-range></nlm-citation>
</ref>
<ref id="B9">
<label>9</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Henry]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
</person-group>
<article-title xml:lang="pt"><![CDATA[Amônia ou fosfato como agente estimulador do crescimento do fitoplâncton na represa de Jurumirim (Rio Paranapanema, SP)]]></article-title>
<source><![CDATA[Revista Brasileira de Biologia]]></source>
<year>1990</year>
<volume>50</volume>
<page-range>883-892</page-range></nlm-citation>
</ref>
<ref id="B10">
<label>10</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Henry]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Simão]]></surname>
<given-names><![CDATA[C.A]]></given-names>
</name>
</person-group>
<article-title xml:lang="pt"><![CDATA[Aspectos sazonais da limitação potencial por N, P e Fe no fitoplâncton da represa de Barra Bonita (Rio Tietê, SP)]]></article-title>
<source><![CDATA[Revista Brasileira de Biología]]></source>
<year>1988</year>
<volume>48</volume>
<page-range>1-14</page-range></nlm-citation>
</ref>
<ref id="B11">
<label>11</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Henry]]></surname>
<given-names><![CDATA[R]]></given-names>
</name>
<name>
<surname><![CDATA[Ibañez]]></surname>
<given-names><![CDATA[M.S.R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Addition of phosphate and ammonia and its effects on the surface phypoplankton in two lakes of Rio Doce Valley Park]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Saijo]]></surname>
<given-names><![CDATA[S]]></given-names>
</name>
</person-group>
<source><![CDATA[Limnological Studies in Rio Doce Valley lakes and pantanal wetland, Brazil (2and report)]]></source>
<year>1987</year>
<publisher-name><![CDATA[Water Research Institute, Nagoya University]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B12">
<label>12</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hernani]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Aspectos morfométricos y teóricos de un embalse tropical de alta montaña: represa La Fe, El Retiro, Colombia]]></article-title>
<source><![CDATA[Revista de la Academia de Ciencias Exactas Físicas y Naturales]]></source>
<year>2002</year>
<volume>26</volume>
<page-range>511-518</page-range></nlm-citation>
</ref>
<ref id="B13">
<label>13</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ibáñez]]></surname>
<given-names><![CDATA[M.S.R]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Response to artificial enrichment with ammonia and phosphate of phytoplankton from lake Paranoá (Brasilia, DF)]]></article-title>
<source><![CDATA[Revista Brasileira de Biología]]></source>
<year>1988</year>
<volume>48</volume>
<page-range>453-457</page-range></nlm-citation>
</ref>
<ref id="B14">
<label>14</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ilmavirta]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Phytoplankton in 35 Finnish brown-water lakes of different eutrophic status. Developments in Hydrobiology]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Sandgren]]></surname>
<given-names><![CDATA[C. D]]></given-names>
</name>
</person-group>
<source><![CDATA[Growth and reproductive strategies of freshwater phytoplankton]]></source>
<year>1980</year>
<month>19</month>
<day>88</day>
<page-range>121-130</page-range><publisher-loc><![CDATA[Cambridge ]]></publisher-loc>
<publisher-name><![CDATA[Cambridge University Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B15">
<label>15</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ilmavirta]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The role of flagellated phytoplankton in chains of small brown-water lakes in southern finland. Annals Botanica Fennici 20: 187-195. Cap. 3]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Sandgren]]></surname>
<given-names><![CDATA[C. D]]></given-names>
</name>
</person-group>
<source><![CDATA[Growth and reproductive strategies of freshwater phytoplankton]]></source>
<year>1983</year>
<month>19</month>
<day>88</day>
<page-range>127</page-range><publisher-loc><![CDATA[Cambridge ]]></publisher-loc>
<publisher-name><![CDATA[Cambridge University Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B16">
<label>16</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Klaveness]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ecology of Cryptomonadida: a first review. Cap. 3]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Sandgren]]></surname>
<given-names><![CDATA[C. D]]></given-names>
</name>
</person-group>
<source><![CDATA[Growth and reproductive strategies of freshwater phytoplankton]]></source>
<year>1988</year>
<page-range>105-133</page-range><publisher-loc><![CDATA[Cambridge ]]></publisher-loc>
<publisher-name><![CDATA[Cambridge University Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B17">
<label>17</label><nlm-citation citation-type="">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Kruk]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Mazzeo]]></surname>
<given-names><![CDATA[N]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Classification schemes for phytoplankton: a local validation of a functional approach to the analysis of species temporal replacement]]></article-title>
<source><![CDATA[]]></source>
<year>2002</year>
</nlm-citation>
</ref>
<ref id="B18">
<label>18</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lewis Jr]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Basis for the protection and management of tropical lakes]]></article-title>
<source><![CDATA[Lakes & Reservoir Research and Management]]></source>
<year>2000</year>
<volume>5</volume>
<page-range>35-48</page-range></nlm-citation>
</ref>
<ref id="B19">
<label>19</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Lewis Jr]]></surname>
<given-names><![CDATA[W]]></given-names>
</name>
</person-group>
<source><![CDATA[Causes for the high frequency of Nitrogen limitation in tropical lakes]]></source>
<year>2002</year>
<volume>28</volume>
<page-range>210-213</page-range><publisher-name><![CDATA[Verhandlungen Internationale Vereinigung für Theoretische und Angewandte Limnologie]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B20">
<label>20</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Magurran]]></surname>
<given-names><![CDATA[A.E]]></given-names>
</name>
</person-group>
<source><![CDATA[Species abundance distribution over time]]></source>
<year>2007</year>
<volume>10</volume>
<page-range>347-354</page-range><publisher-name><![CDATA[Ecology Letters]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B21">
<label>21</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Magurran]]></surname>
<given-names><![CDATA[A.E]]></given-names>
</name>
</person-group>
<source><![CDATA[Measuring ecological diversity]]></source>
<year>2008</year>
<publisher-loc><![CDATA[Oxford ]]></publisher-loc>
<publisher-name><![CDATA[Blackwell Publishing]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B22">
<label>22</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Odum]]></surname>
<given-names><![CDATA[E.P]]></given-names>
</name>
</person-group>
<source><![CDATA[Ecología]]></source>
<year>1973</year>
<edition>3</edition>
<publisher-loc><![CDATA[México ]]></publisher-loc>
<publisher-name><![CDATA[Ed. Interamericana]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B23">
<label>23</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Paerl]]></surname>
<given-names><![CDATA[H.W]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Growth and reproductive strategies of freshwater blue green algae (Cyanobacteria). Cap. 7]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Sandgren]]></surname>
<given-names><![CDATA[C. D]]></given-names>
</name>
</person-group>
<source><![CDATA[Growth and reproductive strategies of freshwater phytoplankton]]></source>
<year>1988</year>
<page-range>261-315</page-range><publisher-loc><![CDATA[Cambridge ]]></publisher-loc>
<publisher-name><![CDATA[Cambridge University Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B24">
<label>24</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Pollinher]]></surname>
<given-names><![CDATA[U]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Freshwater armored dinoflagellates: growth, reproduction strategies, and population dynamics. Cap. 4]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Sandgren]]></surname>
<given-names><![CDATA[C. D]]></given-names>
</name>
</person-group>
<source><![CDATA[Growth and reproductive strategies of freshwater phytoplankton]]></source>
<year>1988</year>
<page-range>134-174</page-range><publisher-loc><![CDATA[Cambridge ]]></publisher-loc>
<publisher-name><![CDATA[Cambridge University Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B25">
<label>25</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[J.J]]></given-names>
</name>
<name>
<surname><![CDATA[Gutiérrez]]></surname>
<given-names><![CDATA[F.L]]></given-names>
</name>
<name>
<surname><![CDATA[Vargas]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Respuesta de la comunidad fitoplanctónica a experimentos de eutrofización artificial realizados en la represa La Fe]]></article-title>
<source><![CDATA[Caldasia]]></source>
<year>2005</year>
<volume>27</volume>
<page-range>103-115</page-range></nlm-citation>
</ref>
<ref id="B26">
<label>26</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Reynolds]]></surname>
<given-names><![CDATA[C.S]]></given-names>
</name>
</person-group>
<source><![CDATA[The Ecology of freshwater phytoplankton]]></source>
<year>1984</year>
<publisher-loc><![CDATA[Cambridge ]]></publisher-loc>
<publisher-name><![CDATA[Cambridge University]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B27">
<label>27</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Reynolds]]></surname>
<given-names><![CDATA[C.S]]></given-names>
</name>
</person-group>
<source><![CDATA[Vegetation processes in the pelagic: a model for ecosystem theory]]></source>
<year>1997</year>
<page-range>371</page-range><publisher-loc><![CDATA[Oldendorf/Luhe ]]></publisher-loc>
<publisher-name><![CDATA[Ecology Institute]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B28">
<label>28</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Reynolds]]></surname>
<given-names><![CDATA[C.S]]></given-names>
</name>
</person-group>
<source><![CDATA[The Ecology of phytoplankton]]></source>
<year>2006</year>
<publisher-loc><![CDATA[Cambridge ]]></publisher-loc>
<publisher-name><![CDATA[Cambridge University]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B29">
<label>29</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Reynolds]]></surname>
<given-names><![CDATA[C.S]]></given-names>
</name>
<name>
<surname><![CDATA[Huszar]]></surname>
<given-names><![CDATA[V]]></given-names>
</name>
<name>
<surname><![CDATA[Kruk]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Naselli-Flores]]></surname>
<given-names><![CDATA[L]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Towards a functional classification of the freshwater phytoplankton]]></article-title>
<source><![CDATA[Journal of Plankton Research]]></source>
<year>2002</year>
<volume>24</volume>
<page-range>417-428</page-range></nlm-citation>
</ref>
<ref id="B30">
<label>30</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Rojo]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Álvarez-Cobelas]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<source><![CDATA[Phytoplankton assemblages of a hypertrophic, gravel-pit lake]]></source>
<year>1991</year>
<volume>24</volume>
<page-range>1550 - 1555</page-range><publisher-name><![CDATA[Verhandlungen Internationale Vereinigung für Theoretische und Angewante Limnologie]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B31">
<label>31</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Rojo]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Álvarez-Cobelas]]></surname>
<given-names><![CDATA[M]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Ecology of phytoplankton in a hypertrophic, gravel-pit lake. IV Chlorophyceae, Chlorococcales]]></article-title>
<source><![CDATA[Algological Studies]]></source>
<year>1995</year>
<volume>77</volume>
<page-range>7-35</page-range></nlm-citation>
</ref>
<ref id="B32">
<label>32</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sandgren]]></surname>
<given-names><![CDATA[C.D]]></given-names>
</name>
</person-group>
<source><![CDATA[Growth and reproductive strategies of freshwater phytoplankton]]></source>
<year>1988</year>
<publisher-loc><![CDATA[Cambridge ]]></publisher-loc>
<publisher-name><![CDATA[Cambridge University Press]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B33">
<label>33</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sierra]]></surname>
<given-names><![CDATA[O]]></given-names>
</name>
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[J.J]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Variación espacio-temporal de biopelículas en la represa La Fe, El Retiro, Antioquia (Colombia)]]></article-title>
<source><![CDATA[Actualidades Biológicas]]></source>
<year>2000</year>
<volume>22</volume>
<page-range>153-168</page-range></nlm-citation>
</ref>
<ref id="B34">
<label>34</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Sommer]]></surname>
<given-names><![CDATA[U]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Phytoplankton succession in microcosm experiment under simultaneous grazing presence and resource limitation]]></article-title>
<source><![CDATA[Limnology and Oceanography]]></source>
<year>1990</year>
<volume>33</volume>
<page-range>1037-1054</page-range></nlm-citation>
</ref>
<ref id="B35">
<label>35</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Tilman]]></surname>
<given-names><![CDATA[D]]></given-names>
</name>
<name>
<surname><![CDATA[Kilham]]></surname>
<given-names><![CDATA[S.S]]></given-names>
</name>
<name>
<surname><![CDATA[Kilham]]></surname>
<given-names><![CDATA[P]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Phytoplankton community ecology: the role of limiting nutrients]]></article-title>
<source><![CDATA[Annual Review of Ecology and Systematics]]></source>
<year>1982</year>
<volume>13</volume>
<page-range>349-372</page-range></nlm-citation>
</ref>
<ref id="B36">
<label>36</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Vargas]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[J.J]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Variación espacio-temporal de las tasas de sedimentación del material sestónico en un embalse tropical de alta montaña: represa La Fe, El Retiro, Antioquia, Colombia]]></article-title>
<source><![CDATA[Actualidades Biológicas]]></source>
<year>2002</year>
<volume>24</volume>
<page-range>73-80</page-range></nlm-citation>
</ref>
<ref id="B37">
<label>37</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Vargas]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
<name>
<surname><![CDATA[Ramírez]]></surname>
<given-names><![CDATA[J.J]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Variación espacio - temporal de las tasas de sedimentación del material sestónico en un embalse tropical de alta montaña: Represa La Fe, El Retiro, Antioquia, Colombia]]></article-title>
<source><![CDATA[Actual. Biol]]></source>
<year>2002</year>
<volume>77</volume>
<page-range>163-170</page-range></nlm-citation>
</ref>
<ref id="B38">
<label>38</label><nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Vincent]]></surname>
<given-names><![CDATA[W.F]]></given-names>
</name>
<name>
<surname><![CDATA[Wurtsbaugh]]></surname>
<given-names><![CDATA[W.A]]></given-names>
</name>
<name>
<surname><![CDATA[Vincent]]></surname>
<given-names><![CDATA[C.L]]></given-names>
</name>
<name>
<surname><![CDATA[Richerson]]></surname>
<given-names><![CDATA[P.J]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Seasonal dynamic of nutrient limitation in a tropical high-latitude lake (Lake Titicaca, Perú-Bolivia): application of physiological bioassays]]></article-title>
<source><![CDATA[Limnology and Oceanography]]></source>
<year>1984</year>
<volume>29</volume>
<page-range>540-552</page-range></nlm-citation>
</ref>
<ref id="B39">
<label>39</label><nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Wurtsbaugh]]></surname>
<given-names><![CDATA[W.A]]></given-names>
</name>
<name>
<surname><![CDATA[Vincent]]></surname>
<given-names><![CDATA[W.F]]></given-names>
</name>
<name>
<surname><![CDATA[Vincent]]></surname>
<given-names><![CDATA[C.L]]></given-names>
</name>
<name>
<surname><![CDATA[Carney]]></surname>
<given-names><![CDATA[H.J]]></given-names>
</name>
<name>
<surname><![CDATA[Richerson]]></surname>
<given-names><![CDATA[P.J]]></given-names>
</name>
<name>
<surname><![CDATA[Lazzaro]]></surname>
<given-names><![CDATA[X]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Nutrientes y su limitación del crecimiento fitoplanctónico. Cap. 7]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Dejoux]]></surname>
<given-names><![CDATA[C]]></given-names>
</name>
<name>
<surname><![CDATA[Iltis]]></surname>
<given-names><![CDATA[A]]></given-names>
</name>
</person-group>
<source><![CDATA[El Lago Titicaca. Síntesis del conocimiento limnológico actual]]></source>
<year>1991</year>
<month>19</month>
<day>91</day>
<page-range>161-175</page-range><publisher-loc><![CDATA[La Paz ]]></publisher-loc>
<publisher-name><![CDATA[Orstom e Hisbol]]></publisher-name>
</nlm-citation>
</ref>
</ref-list>
</back>
</article>